胰腺癌患者身上有一种让家属和医生都感到无力的现象:明明在吃东西,人却在一天天瘦下去——胳膊越来越细、脸颊越来越凹,连站起来的力气都没有。这不是饿。你给他灌再多的营养液也挡不住这种消耗,因为身体已经不会正常使用营养了。它是一场代谢战争,而肿瘤是那个在后方烧粮仓的人。
但这里一直有一个巨大的知识缺口:肿瘤长在胰腺——一个拳头大小的器官——怎么就能让全身的肌肉和脂肪一起崩解?信号是怎么从几厘米大的肿瘤传递到几十公斤的躯体每一处的?
2026年9月,中国医学科学院团队在《Cell》上发表了一项研究,用空间转录组技术首次在组织原位锁定了一套由三种细胞组成的"啸叫回路"。它一旦启动,就自我强化、越来越响——而且在患者体重还没明显下降之前,就已经可以被检测到。
补营养也救不回来的消耗——恶病质到底是什么
要理解这项发现的意义,先得搞清楚一个问题:恶病质和普通消瘦有什么本质区别?
答案是一个词:不可逆。普通饥饿或营养不良,只要恢复营养就能逆转——脂肪存回来、肌肉长回来。但恶病质不是。2011年,一项国际共识将它定义为"以骨骼肌质量持续丢失为特征、且无法通过常规营养支持完全逆转的多因素综合征"。这句话的潜台词冷酷但精确:不是吃不够,是身体已经不知道怎么利用吃进去的东西了。
背后的机制是一个炎症-代谢-厌食的"死亡三角"。肿瘤释放的信号分子——包括强力炎症因子IL-6和TNF-α——引发全身慢性炎症;炎症反过来让身体进入一种"高能耗模式"——静息能量消耗升高、蛋白质分解加速、脂肪疯狂动员;同时大脑中负责食欲的区域被抑制,病人根本不想吃。三个齿轮互相咬合,单独拆掉一个没用。
胰腺癌是恶病质发生率最高的实体肿瘤——超过80%的患者会中招。更残酷的是,60%-70%的患者在确诊胰腺癌时就已经进入了恶病质。一旦瘦到皮包骨、进入所谓的"难治性恶病质",抗癌治疗基本无效,预期生存不足三个月。恶病质直接导致约20%-30%的癌症死亡——不是肿瘤杀死了他们,是消耗本身。
这也是为什么医生们一直在找一个"早期信号"——能在体重还没明显下降之前,就嗅到恶病质的苗头。但这个信号一直藏得很深。
那么问题来了:肿瘤是怎么做到这一点的?
肿瘤里藏着一套"啸叫回路"——三种细胞互相喊话、越喊越响
想象你在一间安静的房间里,把麦克风对准音箱。一开始只是轻轻嗡了一声——几乎听不见。但麦克风把这声嗡鸣收进去、放大、再从音箱放出来,紧接着又被麦克风收进去、再放大。不到三秒钟,整个房间灌满了刺耳的啸叫。你捂耳朵也来不及了,因为它已经自成闭环。
中国医学科学院团队发现的,正是胰腺肿瘤内部一套精确的、由三种细胞组成的"啸叫回路"。他们用了一种叫空间转录组的技术——可以简单理解成给组织切片上的每个细胞拍一张"在说什么话"的快照,同时保留它们的物理位置——在66例胰腺癌组织切片中,清晰捕捉到了三类细胞紧挨在一起形成的一个"小圈子",而且这个圈子在恶病质越严重的组织中越密集。
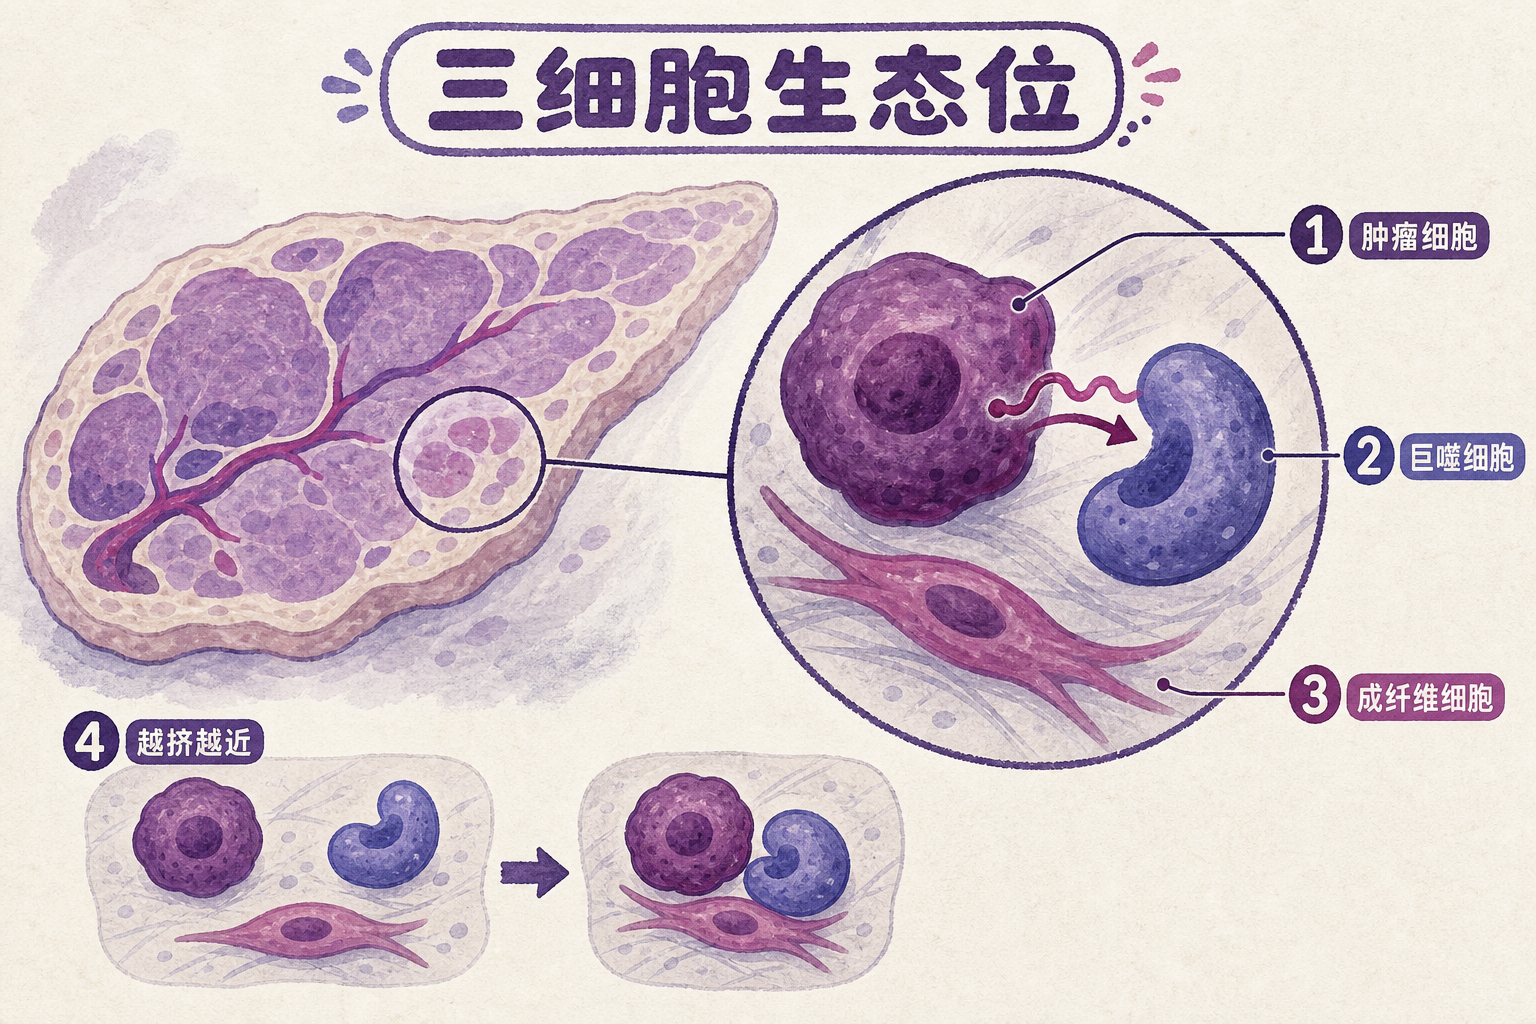
这三类细胞的分工如下:
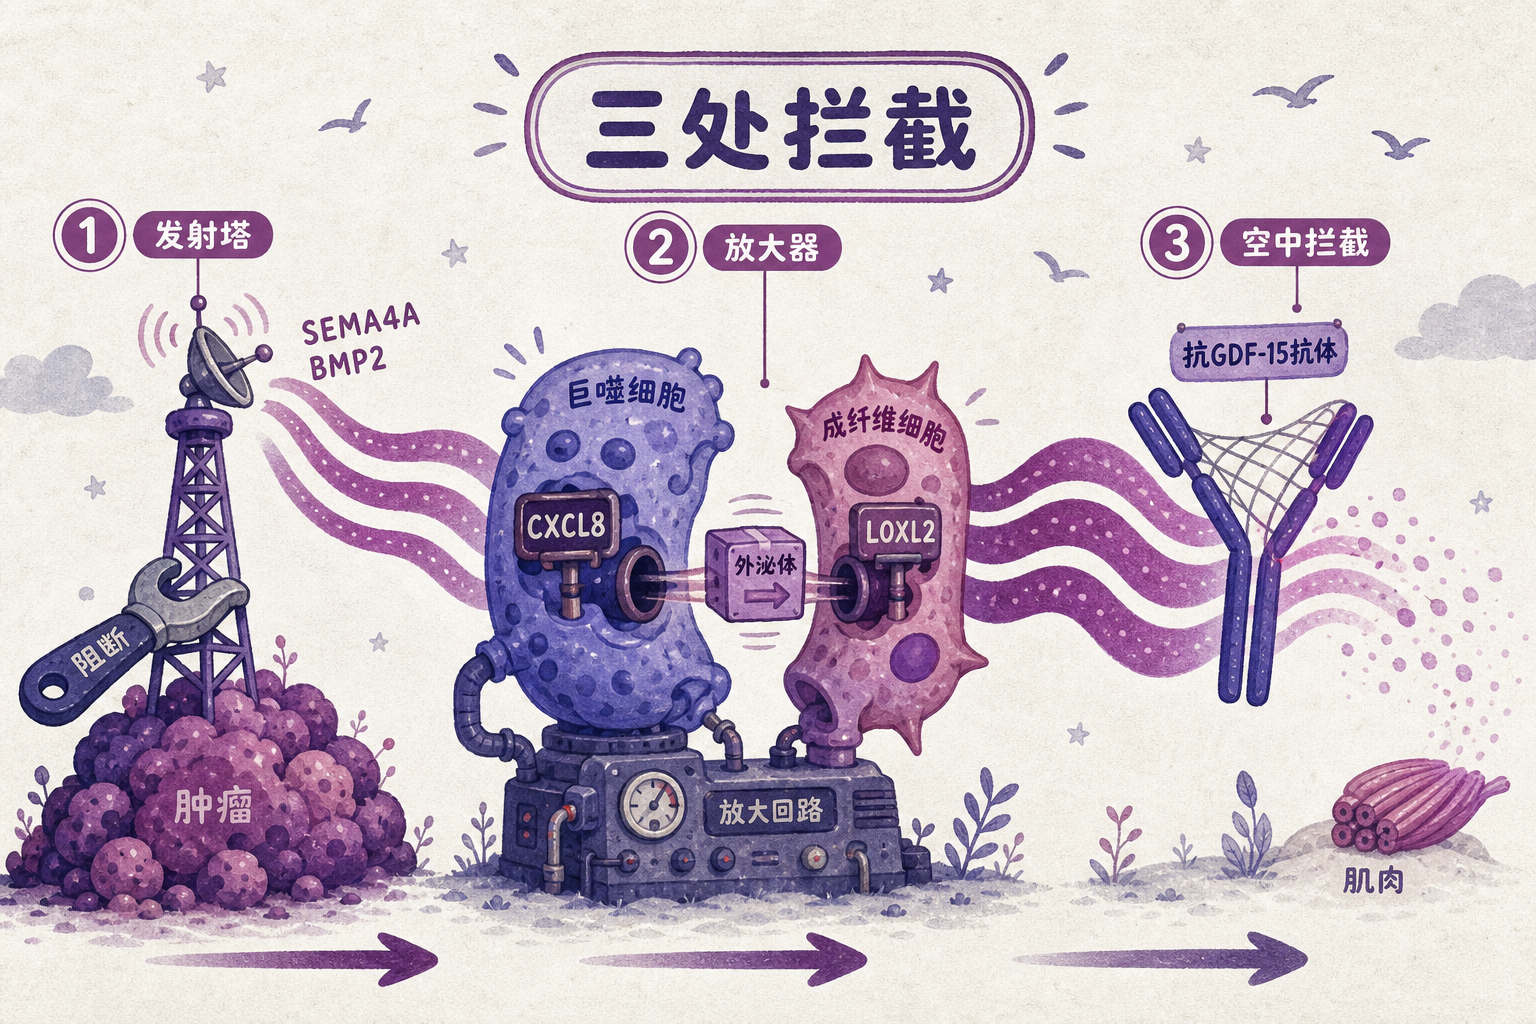
第一棒——肿瘤细胞发出"启动信号"。 一种叫SEMA4A的蛋白是这个回路的起点。它由肿瘤细胞发出,然后推了一把骨形态发生蛋白BMP2。BMP2像一把钥匙,把周围游荡的免疫细胞——巨噬细胞——拧成一种特殊的促消耗表型。这种被改造的巨噬细胞带上了AQP9这个标记,从此不再是肿瘤的"警察",而成了消耗的"帮凶"。
第二棒——巨噬细胞把信号放大并转发。 被改造的巨噬细胞开始大量分泌CXCL8——你可能更熟悉它另一个名字IL-8,一种强力炎症因子。CXCL8的目标是肿瘤里的"基建队"——成纤维细胞。成纤维细胞平时负责修修补补、维持组织支架,但被CXCL8一激活,它通过细胞内部的应激信号通路被重塑成LOXL2⁺型的"叛徒"。
第三棒也是最致命的一棒——成纤维细胞把信号"打包寄回"给肿瘤细胞。 LOXL2⁺成纤维细胞把LOXL2蛋白装进外泌体——一种细胞吐出来的纳米级囊泡,可以理解为细胞之间的"加密快递包裹"。外泌体带着经过糖链化学修饰的LOXL2穿越组织间隙,进入肿瘤细胞内部,通过激活一个叫FOSL1的基因开关——而FOSL1恰好直接卡在SEMA4A基因的启动按钮上——让肿瘤细胞制造出更多的SEMA4A。
于是回路闭合了:肿瘤细胞喊了一声→巨噬细胞把音量放大→成纤维细胞把放大的信号打包寄回去→肿瘤细胞喊得比第一声更响。每一圈循环,信号就强一分。
更绝的是,SEMA4A还能直接作用于远处的肌肉细胞。它通过与肌肉细胞表面的对接蛋白NRP1结合,抑制了维持肌肉生长的Akt信号通路,同时激活专门拆解蛋白质的泛素-蛋白酶体系统。也就是说,这个啸叫回路不仅自我强化,还在同步拆解身体——信号越响,肌肉越少。
这种机制完美解释了临床上长久的困惑:为什么恶病质一旦启动就很难逆转?因为它不是一个阶段性的破坏,而是一个持续加速的正反馈闭环。你没办法靠补营养来抵消——营养进来还没等用上,肌肉就已经在被拆了。
团队的证据链很扎实:他们分析了43例胰腺癌患者的单细胞基因表达图谱——相当于给每个细胞单独测了一遍它正在活跃使用哪些基因——覆盖了非恶病质、前恶病质和恶病质三个疾病阶段。空间分析显示,这三类细胞的物理共定位随着恶病质严重程度逐渐递增。更关键的是,在63例术后随访队列中,38例术前尚未恶病质的患者里,有29例术后新发了恶病质——而这29人的生态位风险评分,显著高于9例术后始终未恶病质的患者。换句话说,你可以在手术切下来的组织里看到这套回路"搭没搭起来",从而预测一个现在看着还正常的胰腺癌患者,接下来会不会被消耗击垮。
那么问题又来了:既然能提前看到,我们能提前动手吗?
在啸叫声还没响起来之前——早期窗口能改变什么
对恶病质药物研发稍有了解的人都知道,这是一部让人沮丧的失败史。
过去二十年,研究者们尝试过多种靶点——抗TNF-α药物(无效)、抗IL-6药物(仅微弱的肌肉保护效果)、胃饥饿素受体激动剂(能增体重但握力没改善,欧洲拒绝批准)。至今,美国FDA没有批准任何一款恶病质药物。失败的原因很统一:要么是单打一条通路不够——恶病质本质上是一条信号冗余的多车道高速公路——要么是试验启动太晚,病人已经滑入难治期,什么药都来不及了。
但最近出现了两个重要转机。
第一个是2024年一项发表在《新英格兰医学杂志》上的II期试验:一种靶向GDF-15的抗体药物。GDF-15可以理解为肿瘤向全身广播的"拆家指令"——它直接告诉肌肉和脂肪:拆掉。抗体把这条指令拦截后,患者在12周内体重增加了约2%——听着不多,但在恶病质这个"只降不升"的战场上,任何正向拐点都极其罕见——同时食欲和活动量同步改善。这是靶向恶病质全身因子的最强临床信号。
第二个就是这次Cell论文的意义。如果说GDF-15是肿瘤发出的"消耗指令"本身,那这个三细胞生态位就是这条指令的"发射塔"和"放大器"——它告诉你这个指令是怎么被制造出来、怎么被放大、怎么被维持的。从治疗逻辑上看,你可以选择三种干预策略:在发射塔层面——阻断SEMA4A或BMP2信号;在放大器层面——截断CXCL8或LOXL2外泌体回路;或直接在空中拦截已经发出的消耗指令——中和GDF-15。三条线可以并行推进。
但必须冷静——从实验室发现到临床落地,中间还横着好几道实实在在的坎。
第一道坎是因果链的完整度。三细胞生态位的证据目前主要是横断面的空间相关性——我们看到这三类细胞在恶病质组织中凑在一起,小鼠实验也支持因果关系,但在人体中,"检测到生态位→一定会发生恶病质"这个前瞻性判断,还需要更大规模的独立队列来验证。目前的预测模型来自63人的单中心随访,距离临床级生物标志物还有一段路要走。
第二道坎是外泌体"桥梁"的未解之处。从肿瘤局部的啸叫回路到远端肌肉溶解,中间的信号传递路线——外泌体如何从胰腺穿越到四肢肌肉、在血液中能存活多久、是否被肝脏或脾脏中途拦截——这些仍远未厘清。
第三道坎是安全性。BMP2参与骨骼发育,LOXL2参与组织纤维化修复——直接抑制它们,可能付出骨骼和伤口愈合的代价。CXCL8抑制剂已经进入了I期临床试验,但离上市至少还有五到八年。
不过,这项研究真正的价值也许不在某一款药上,而在于它改变了观察恶病质的方式:恶病质不是肿瘤"顺便"造成的副作用,而是肿瘤微环境主动、精确搭建的一套多细胞信号装置。它有结构、有正反馈逻辑、有可追踪的演化轨迹。当你把一个看起来"全身性的、弥散的、没办法的"消耗过程拆解成一个具体的、可检测的、甚至在早期可干预的细胞回路时,它就从宿命变成了问题。
过去治恶病质只能在病人瘦到脱形时"救火"。现在有了一条可能的路:在啸叫声还没响起来之前,找到那支正对着音箱的麦克风,把它挪开。