癌细胞有一个鲜为人知的"瘾"——它对核苷酸(DNA和RNA的基本组成单元)的需求近乎疯狂。一个正常细胞分裂一次,需要复制一套DNA;而癌细胞在失控增殖时,核苷酸的消耗量是正常细胞的6到11倍。它贪婪地从血液里掠夺这些分子,维持自己的扩张。
但南京大学吴锦慧团队打了一个危险的主意:既然癌细胞嗜核苷酸如命,那干脆再喂它一种——看它会不会被自己的贪婪噎死。
这听起来像自杀。然而在2026年9月发表的一项研究中,这个策略不但没喂饱肿瘤,反而让化疗药在癌细胞内暴增500倍,同时激活了一场免疫系统对肿瘤的全面围剿。
为什么化疗药刚进癌细胞就被"吃"掉了?
故事要从一种用了六十年的老药说起。
氟尿苷(简称FUDR)是结直肠癌化疗方案里的常客。它的原理很直接:伪装成DNA的构件,混进癌细胞的核苷酸工厂,卡住生产线的关键齿轮。癌细胞一旦无法复制DNA,就会走向死亡。
但FUDR有一个致命短板——它在癌细胞内几乎立刻就被销毁了。
打进体内的FUDR需要先在癌细胞内被打上磷酸基团的化学标签,激活成一种叫做"活性代谢物"的真正武器——它的化学名叫单磷酸氟尿苷,我们叫它FdUMP。可是癌细胞里驻扎着至少五种专门分解嘧啶类分子的酶,它们像流水线上的质检员,几乎一见到FdUMP就把它拆回无毒碎片。结果呢?活性药物在细胞里只待不到9分钟就被清理干净——半衰期只有0.14小时。
这就像你往一个漏水的桶里倒水:外面倒得再快,桶里永远是空的。 几十年来,药学研究者想尽办法堵这个洞——用药物延缓它在体内的分解、用口服前药绕过肝脏的第一轮代谢、用联合给药对抗耐药——但临床效果始终不尽如人意,晚期结直肠癌尤其如此。
那么问题来了:有没有一种办法,能让癌细胞的"质检员"忙到没空拆化疗药?
用癌细胞的"口粮"堵住它的消化系统
南京大学团队想到的答案,藏在核苷酸的化学家族树里。
细胞内的核苷酸分两大支:构成DNA的脱氧核糖核苷酸,和构成RNA的核糖核苷酸。它们在代谢中走同一条流水线——同一组酶既加工DNA前体,也加工RNA前体。而癌细胞因为增殖亢进,这条流水线上的"订单量"远超正常细胞。
这意味着什么?这意味着如果你往系统里灌入大量的RNA前体——比如一种叫单磷酸胞苷(CMP,RNA的四种字母之一)的天然核苷酸——那五台负责销毁FdUMP的"质检机器"就会被海量的CMP淹没。它们忙着处理CMP,就腾不出手来拆化疗药了。
这个思路的妙处在于:CMP不是外来的毒药。它本来就是细胞每天都在用的东西,是一种低毒的天然代谢物。癌细胞非但不会排斥它,还会如饥似渴地把它吞进去——因为癌细胞对核苷酸的贪婪是无差别的。
研究团队用全基因组CRISPR筛选——相当于给癌细胞的每一个基因挨个"关灯",看哪个开关能让FUDR药效大增——锁定了那五台关键的"质检机器":两种负责给分子加磷酸标签的酶,和三种负责拆标签的酶。CMP及其胞内代谢产物能同时、竞争性地卡住这五种酶的活性位点,达成了一种现有任何小分子抑制剂都做不到的"多点同时封锁"。
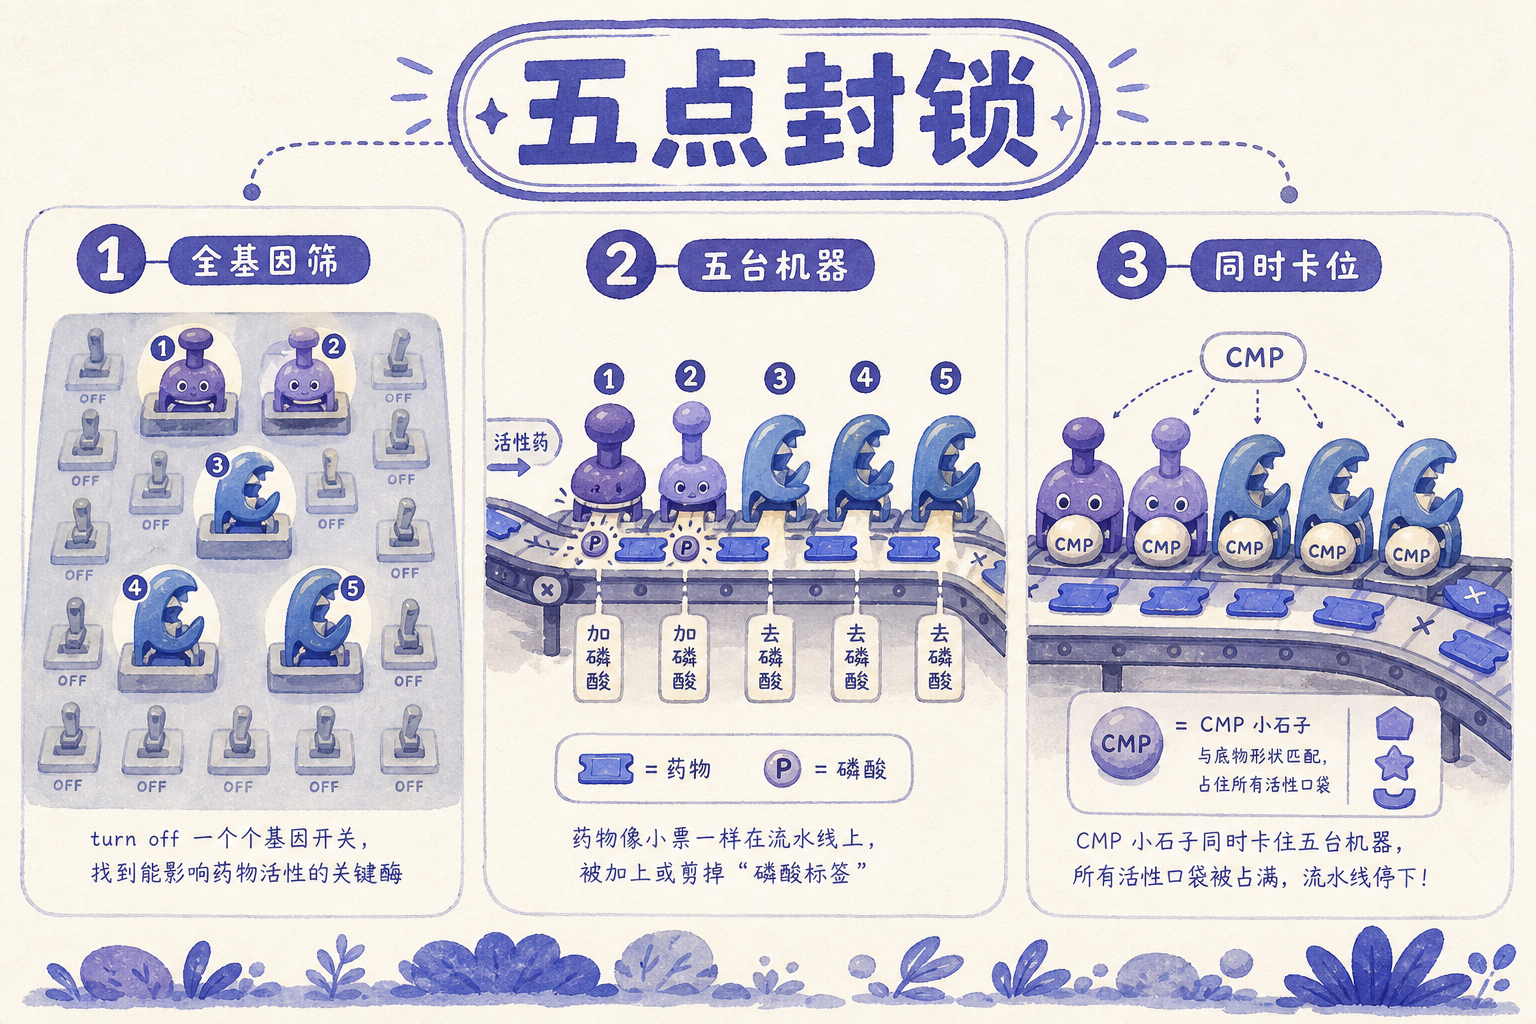
封锁的效果令人瞠目:用一种能精确称量分子的仪器测量癌细胞内FdUMP的浓度,峰值比不用CMP时高出500倍以上;药物在细胞内的半衰期从0.14小时延长到了3.45小时——从不到9分钟拉长到三个半小时,延长了二十多倍。一漏就是六十年的桶,终于被一块砖头实质性堵住了。
但真正让研究者意外的,是后面发生的事。
化学药怎么变成了免疫药?
FdUMP在癌细胞内大量累积后,首先制造了一场精准的"供应链事故"。
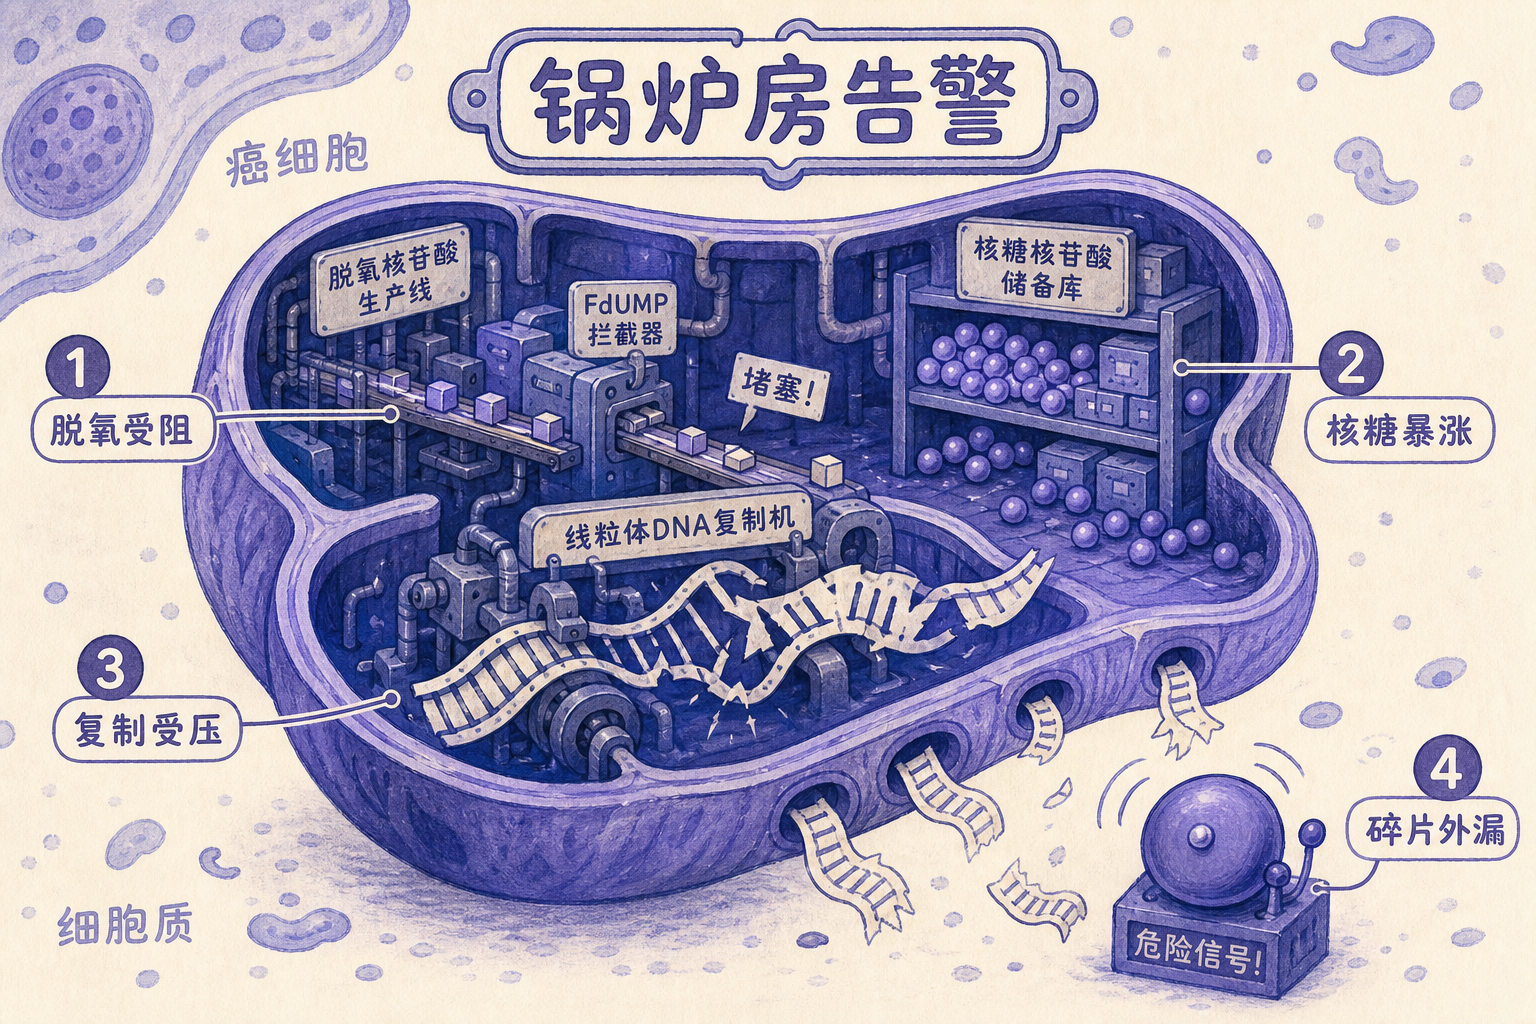
细胞合成DNA需要脱氧核糖核苷酸和核糖核苷酸保持精确的比例。FdUMP卡住了脱氧核苷酸的生产线,而CMP又让核糖核苷酸一侧的"库存"暴涨。这种失衡迫使癌细胞的线粒体——细胞里负责供应能量的微型"锅炉房"——陷入严重的复制压力。线粒体自己的DNA(mtDNA)在复制时频频断裂,碎片从线粒体膜上的孔洞漏进了细胞质。
这就出大事了。
在正常细胞的"治安守则"里,DNA只允许待在一个地方:细胞核(主人的DNA)或线粒体内部(锅炉房的DNA)。细胞质里一旦出现游离的DNA片段,就只有一个解释——要么是病毒入侵,要么是细胞正在崩解。进化给哺乳动物配备了一套极其灵敏的"胞质DNA防盗警报":一个叫cGAS的传感器蛋白一旦抓到细胞质里的DNA片段,就会立刻合成警报信号分子,这个分子再去激活下游的STING蛋白——STING像是警报控制面板,一旦被触发,它会同时拉响两条警报线:一条命令细胞大量分泌I型干扰素(免疫系统的紧急广播信号),向周围的免疫细胞喊"这里有情况";另一条促进干扰素刺激基因的表达,把细胞自己武装成免疫信号塔。
在实验中,CMP+FUDR组合让编码干扰素β的基因Ifnb1表达量飙升了300倍以上。这个数字意味着什么?意味着癌细胞不再是安静地死去——它在大声呼救,而呼救信号引来了T细胞、自然杀伤细胞和树突状细胞等各路免疫兵力的围攻。用研究团队的话说,化疗和免疫治疗不再是两件分开的事:同一颗药丸,换了一种核苷酸搭档,化疗的"毒杀"就被转译成了免疫系统的"围剿"。
要把这个机制变成可用的疗法,还需要解决一个工程问题:FdUMP和CMP怎么同时、同地、按比例地进入癌细胞?研究团队的方案是杂化脂质纳米粒——一种用脂质分子包裹的微型载药胶囊,直径大约只有头发丝的千分之一。把FdUMP和CMP共包载在同一颗纳米粒里,就能保证两样东西永远一起到达。改造后的纳米粒在多种结直肠癌小鼠模型中展现出优异疗效:联合PD-L1抑制剂(一种帮免疫细胞"松开刹车"的药物)后,一些小鼠的肿瘤完全消失。而如果把小鼠的STING基因敲除,所有疗效归零——这说明整条路径确实依赖STING,不存在别的"后门"。
这不是一个孤立的发现。就在2026年8月,Moderna和默沙东的个性化mRNA癌症疫苗在大规模III期试验中达到了主要终点:治疗后癌症没有复发——史上第一次。癌症免疫治疗正在经历范式切换:从"帮免疫细胞识别肿瘤",升级到"让肿瘤自己变成免疫原"。CMP+FUDR的策略恰好嵌进了这个新范式的核心逻辑。
警报响了,但谁来关?
然而,STING这条通路也是一把不折不扣的双刃剑。
这不是比喻——而是有真实病例支撑的警告。一种叫SAVI综合征的罕见遗传病,就是STING功能获得性突变导致的:患者的先天免疫系统从婴幼儿时期就处于持续激活状态,导致全身性的自身炎症和组织损伤,严重时可致命。STING就像一颗手雷,拉环之后不分敌我。
在癌症治疗领域,STING激动剂的临床前路已经摔过几次跤。最早进入临床试验的STING激动剂DMXAA在小鼠身上效果奇好,却在非小细胞肺癌III期试验中彻底失败——事后才发现,这个分子只激活鼠源STING,对人源STING无效。这是一个昂贵的物种差异教训。后续的STING激动剂在临床试验中普遍面临同一个困境:低剂量时抗肿瘤免疫不够强,高剂量时又出现发热、免疫系统过度激活导致的全身性炎症(医学上叫细胞因子风暴)等严重副作用,而且高剂量STING激活甚至被证明会直接诱导抗癌主力——一种叫CD8+ T细胞的杀伤性免疫细胞——凋亡。油门踩得太猛,发动机炸了。
南京大学这项研究一个值得注意的优势在于:它不直接注射STING激动剂。它通过调节肿瘤细胞内部的核苷酸代谢来间接、局部地激活STING——相当于只在着火的房间里拉响警报,而不是在全楼广播。但这是在小鼠身上看到的"局部"优势。进入人体后,纳米粒的分布、CMP的全身代谢、以及肿瘤微环境中STING激活是否会溢出到正常组织,目前没有答案。研究者自己也承认,mtDNA耗竭并未完全消除cGAS-STING激活,意味着还有基因组DNA等其他DNA来源参与——信号来源不完全可控。
还有一个更根本的问题:癌细胞的核苷酸代谢亢进是它耐药的基础。用CMP来"堵塞"代谢流水线,癌细胞会不会通过上调其他酶、改变转运蛋白表达或者激活替代代谢通路来绕过去?氟嘧啶类药物在过去六十年里遇到的所有耐药机制,CMP策略大概率也不会完全免疫。
但这些风险并不削弱这项研究的价值。它第一次证明了,利用癌细胞的核苷酸成瘾来同时增强化疗和免疫激活是可行的——而且用的是一种天然、低毒、已经被人体广泛耐受的分子。这不仅是给氟嘧啶类药物续命,更是在核苷酸代谢与先天免疫之间打开了一条新的通路:今后任何能制造核苷酸失衡的干预,都可能成为撬动cGAS-STING免疫应答的支点。
对正在接受结直肠癌治疗的患者来说,这个发现距离临床还很远——从小鼠到人,隔着数年甚至十余年的转化研究。但它指向一个令人期待的方向:未来的化疗方案或许不再只是在"杀死癌细胞"和"损伤正常组织"之间走钢丝,而是能让化疗本身变成免疫系统的"吹哨人"。
过去治癌,化疗是锤子,免疫是哨子——分属两个工具箱。南京大学这项研究给了我们一把锤哨一体的新工具:砸下去的每一下,都会响。