你身体里每一个细胞都运行着一座蛋白质工厂。这座工厂的经理叫 mTORC1——它每天根据你吃了多少蛋白质,决定工厂是扩建还是减产。
衰老生物学最坚固的发现之一:让这位经理少加班,从酵母到小鼠,动物的寿命都会延长。问题在于,目前唯一能药用的手段是一把钝刀:雷帕霉素。它在给 mTORC1 踩刹车的同时,会误伤一条姐妹通路,导致胰岛素抵抗和免疫抑制。领域苦寻了几十年"只刹一个、不碰另一个"的精准方案。
2026 年 9 月,中国科学家在果蝇体内找到了一个意想不到的入口。
一种此前被认为只是"氨基酸仓库"的储存蛋白——Lsp2——竟是一把专门调节 mTORC1 某条特定功能支线的精密扳手。敲掉它,果蝇的寿命延长近三成,繁殖和运动能力却毫发无损。这项由湖南师范大学翟宗昭团队联合多家机构完成的研究,发表在《自然》杂志上。
它揭示的逻辑,可能让抗衰老药物开发绕过雷帕霉素半个世纪的困境。
为什么 mTORC1 是衰老的核心开关,而雷帕霉素为什么不够好?
要理解这项发现为什么重要,得先理解 mTORC1 在细胞里到底在做什么。
这个缩写全称很长——"哺乳动物雷帕霉素靶蛋白复合物 1"——但你可以把它想象成工厂经理。它的办公室不固定:只有当氨基酸充足时,一套分子转运系统才会把它"请"到溶酶体表面——那是细胞内部的营养调度中心,到了那里 mTORC1 正式上岗。
上岗之后,mTORC1 要做两件大事。其一,激活一条推动蛋白质生产线运转的激酶;其二,磷酸化一个叫 4E-BP 的刹车蛋白——磷酸化相当于给蛋白贴上"放行"标签,在这里就是"交钱解除手刹"——让刹车松开,翻译得以全速进行。两件事合起来,就是一句指令:营养充足,开工造蛋白。
但这句指令的力道,与寿命长短直接挂钩。2013 年《自然》一篇里程碑综述总结道:抑制 mTORC1 是目前除饮食限制外,唯一在酵母、线虫、果蝇、小鼠中均被证实能延长寿命的干预手段。而且它的延寿效应独立于胰岛素信号通路——这是一条进化上完全保守的、专管"营养→寿命"的独立线路。
那么,用雷帕霉素直接抑制 mTORC1 不就行了?不行。
雷帕霉素的麻烦是,它不只抑制 mTORC1。2012 年《科学》的一项研究揭示:长期使用雷帕霉素会破坏 mTORC2——mTOR 家族中分管代谢与免疫调节的另一位成员——的组装,导致肝脏胰岛素抵抗和糖异生失控,也就是肝脏对胰岛素不再敏感,还自己不停造葡萄糖。这相当于你为了给工厂减速,把食堂和医务室也一并断电了。而且雷帕霉素本身就是 FDA 批准的免疫抑制剂——临床试验数据表明,接受 mTOR 通路抑制剂的患者中,27% 需要抗生素治疗感染,而对照组只有 8%。
更棘手的是,2008 年一项关键研究发现:4E-BP 的磷酸化对雷帕霉素有"抗性"——长期处理下,另一条下游激酶的活性被持续压制,但 4E-BP 的刹车却会慢慢恢复。换句话说,雷帕霉素压不住 mTORC1 最核心的那条下游支线。
那么问题来了:有没有办法只掐 mTORC1 的某一条特定支线,而不是把它整个关掉?
工厂里有一批特殊零件图纸,而 mTORC1 对它们格外在意
答案藏在工厂订单系统的一个细节里。
细胞里大约有 100 种信使 RNA(mRNA,即基因到蛋白质的施工指令单)非常特殊。它们的开头——在分子帽结构之后——不是通常的碱基字母 A 或 G,而是一串连续的嘧啶(C 和 U)。这串信号叫"5′ 末端寡嘧啶基序"——开头的 C 是不变的,后面跟 4 到 15 个 C 或 U。科学家称它们为 TOP mRNA。
TOP mRNA 有一个惊人的身份:它们几乎全部编码"翻译机器"本身的零件——79 种核糖体蛋白(核糖体是细胞里把氨基酸串成蛋白质的装配机器),再加上各种翻译因子的亚基。换句话说,TOP mRNA 是工厂扩建所需的全部零件图纸。它们加起来,占了细胞总转录本的 15% 到 20%。
而 mTORC1 最快速、最显著的作用靶标,正是这批 TOP mRNA。2012 年《自然》一项核糖体图谱研究给出了铁证:把 4E-BP 敲除后,mTOR 抑制剂完全丧失了对 TOP mRNA 翻译的抑制能力——4E-BP 是 mTORC1 选择性调控这条支线的唯一必需执行者。
为什么 mTORC1 能"挑出"这批图纸?机制比教科书上写的更优雅。负责启动翻译的起始因子对 TOP mRNA 的帽结构亲和力天然就比普通 mRNA 弱大约三倍——因为帽后第一个字母是 C 而不是 A 或 G。这意味着,当 mTORC1 失活→4E-BP 变成刹车→开始"抢"翻译起始因子的时候,亲和力更弱的 TOP mRNA 率先被挤出翻译队列。普通 mRNA 因为"抓得更紧",还能勉强维持翻译。
2024 年,单分子成像技术给出了直接证据。用 mTOR 抑制剂处理细胞后,TOP mRNA 的翻译比例从 74% 骤降至 16%,而普通 mRNA 只从 86% 降到 77%。一种精密的"亲和力落差"机制,让 mTORC1 能够在不碰普通蛋白合成的同时,精确调节核糖体这个"新建工厂产能"的速度。
这条调控支线,恰恰是雷帕霉素压不住的那条。
一个不该出现在这里的仓库管理员
Lsp2 原本在教科书里是个无聊的蛋白。
它的全名叫"幼虫血清蛋白 2",在果蝇幼虫期间大量合成、分泌到血淋巴(果蝇的"血液")里,功能被认为就是储存氨基酸——一个营养仓库,等蛹变态时再拆了用。没人觉得它和寿命调控有什么关系。
翟宗昭团队在筛选中发现:给果蝇喂必需氨基酸后,Lsp2 的表达量在 7 小时内飙升了 80 倍。这个响应速度远超"仓库"需要的节奏——它看起来更像一个信号分子。
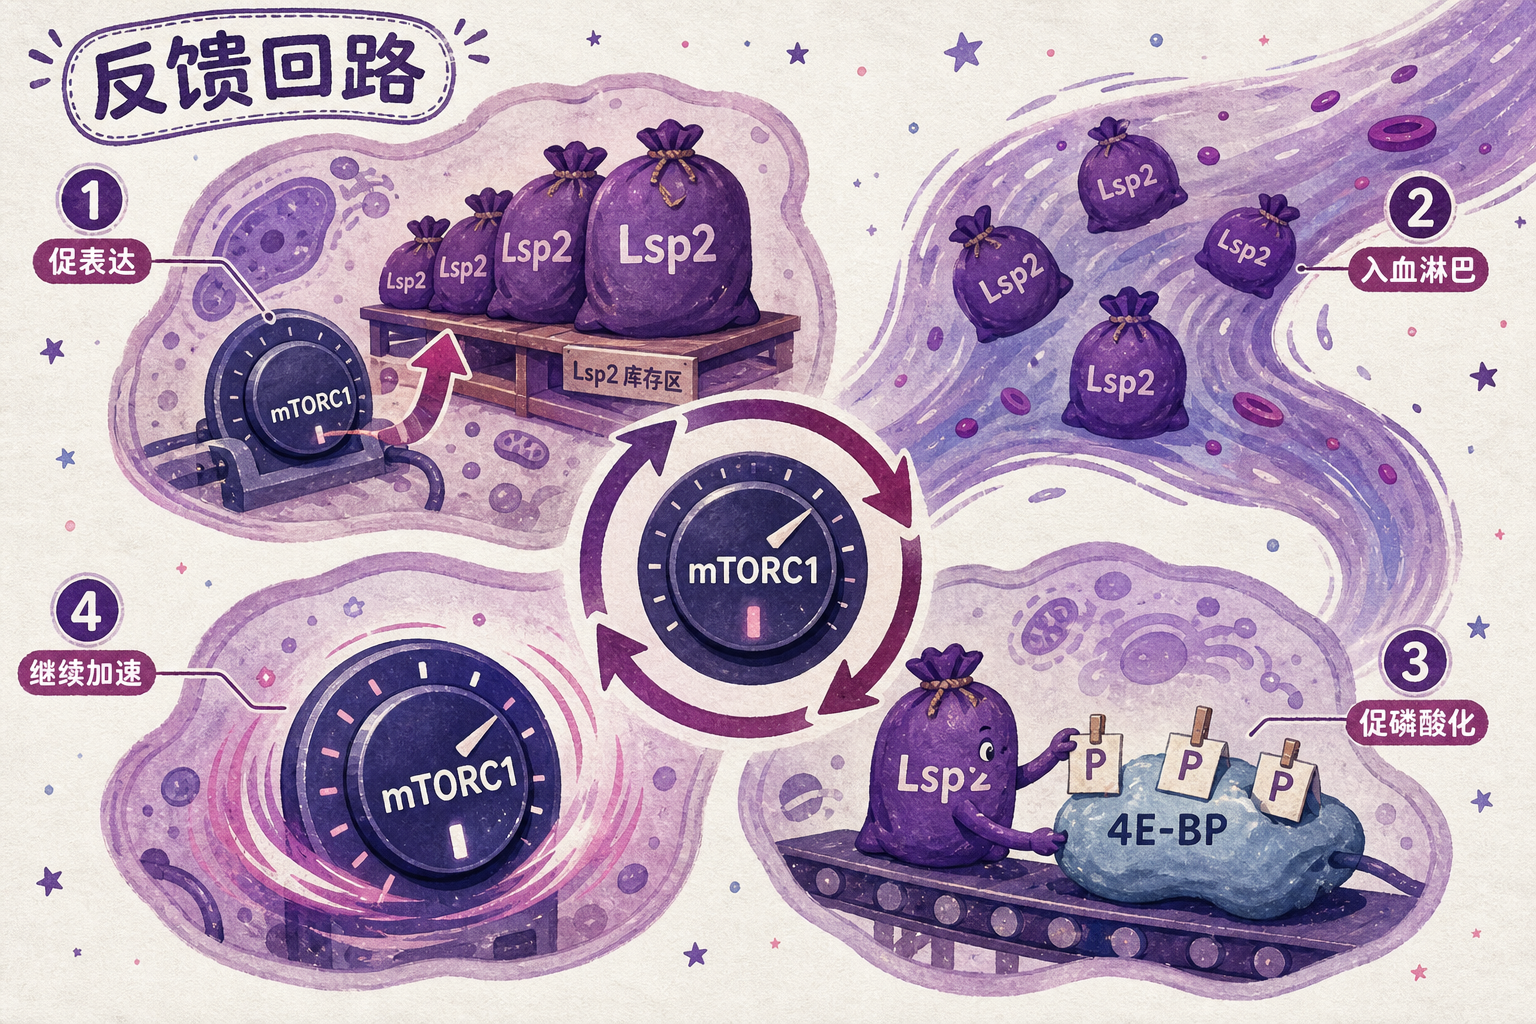
接下来的实验环环相扣。他们证明:mTORC1 激活会诱导 Lsp2 表达;而 Lsp2 蛋白分泌到血淋巴后,反过来又增强 mTORC1 对 4E-BP 的磷酸化。一个标准的正反馈回路——mTORC1 让 Lsp2 升上去,Lsp2 再回来告诉 mTORC1"继续加速"。他们把这个回路定义为"mTORC1 反馈激活因子"。
那如果把 Lsp2 敲掉呢?
结果令人震惊。在五种不同蛋白含量的饮食上,Lsp2 基因敲除的果蝇寿命都显著延长:中位寿命增幅从 14% 到 28% 不等。尤其在接近正常饮食的条件下,增幅最大——28%。 相反,过表达 Lsp2 在低蛋白饮食上让寿命缩短了 38%。
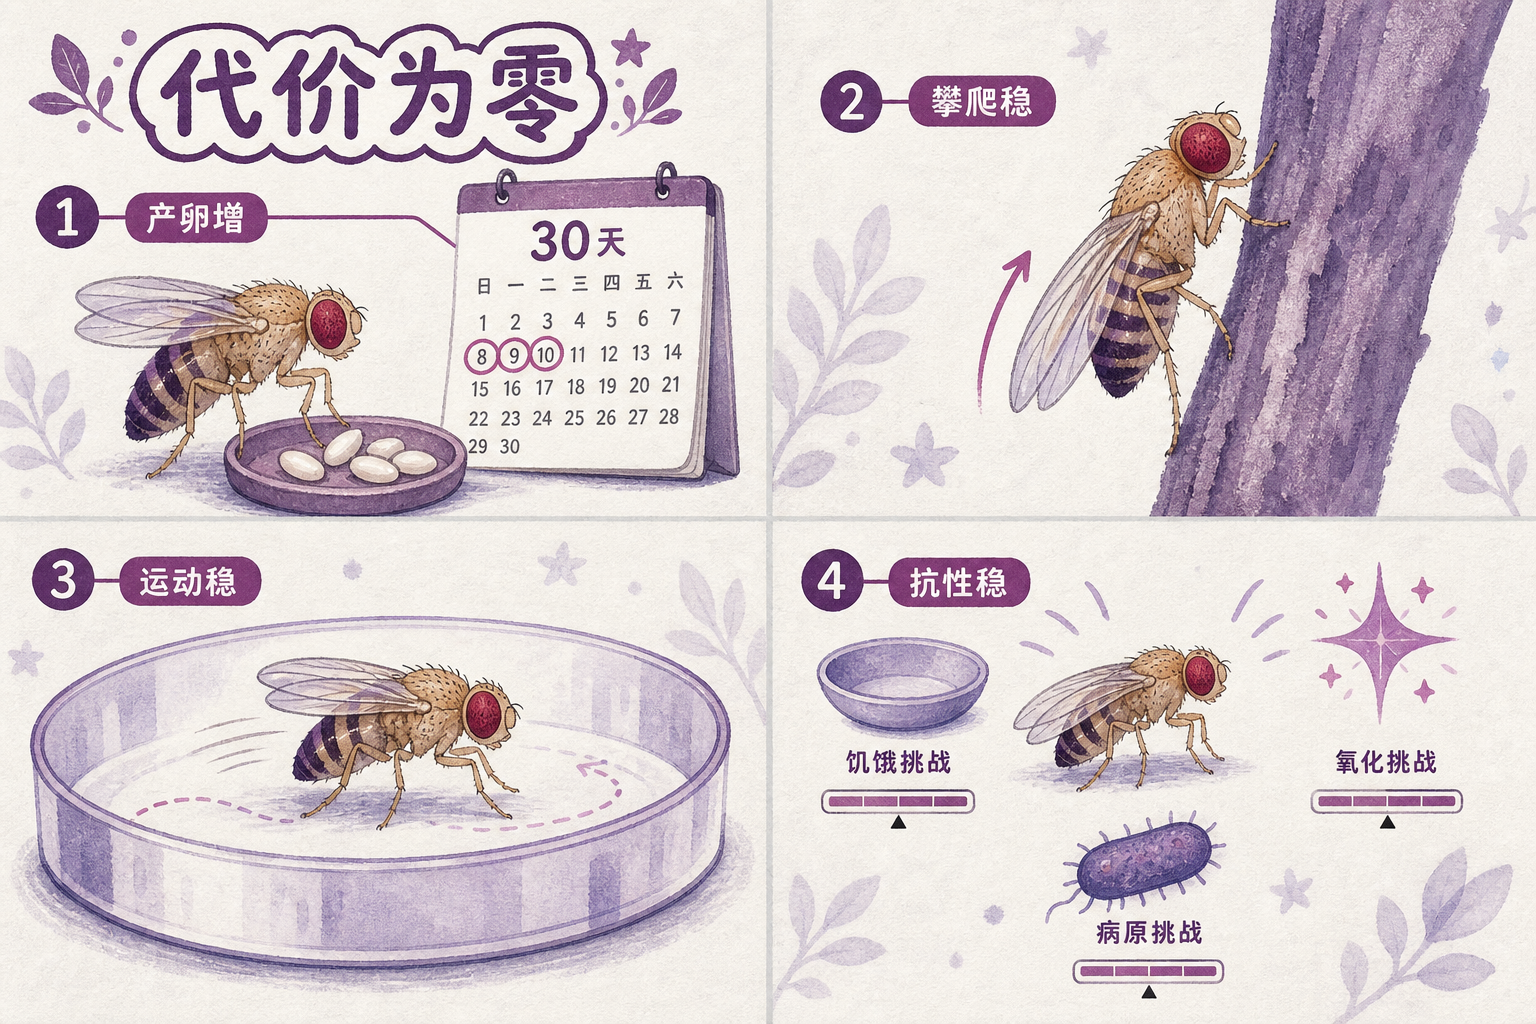
但真正让这个发现区别于雷帕霉素的是——代价为零。连续 30 天监测产卵量,敲除组不仅没有下降,8 到 10 日龄还显著增产。攀爬能力、自发运动、抗饥饿能力、抗氧化应激、抗细菌感染——全部与对照组没有统计差异。换句话说,Lsp2 敲除带来的延寿,不是以牺牲其他生命功能为代价的——这和雷帕霉素诱导的代谢紊乱形成了鲜明对照。
翻译组学分析(大规模测量细胞内所有 mRNA 正在被翻译成蛋白质的效率)给出了机制上的最后一环。在 Lsp2 突变体中,翻译效率显著下调的 66 个基因里,有 48 个是核糖体蛋白——工厂扩建的图纸,被集体搁置了。而如果同时把 4E-BP 也敲掉,这 48 个基因的翻译下调就完全消失。也就是说,Lsp2 对寿命的调控完全走的是 4E-BP→TOP mRNA 这条支线,不碰 mTORC1 的其他功能。
这其实不是生物学史上第一次"仓库管理员升任总开关"。1987 年,《科学》发表了一项颠覆性发现:晶状体里的"结构蛋白",竟然就是一批本来负责细胞能量代谢的酶——进化不过是把它们"借调"过去填透镜材料的。这个现象后来被命名为"兼职蛋白"——一种蛋白,两份工作。Lsp2 是最新加入这个俱乐部的成员:从氨基酸仓库,到 mTORC1 反馈开关。
从一只果蝇到人类的药房,中间要跨过几道坎?
一项果蝇研究登上《自然》,不只因为它讲了一个漂亮故事,更因为它可能指向一种全新的药物策略。
目前的产业版图是这样的:全球 mTOR 抑制剂市场 2024 年约 72 亿美元,预计 2030 年达 115 亿美元。但市场的引擎一直是肿瘤,不是衰老。在长寿领域,真正的瓶颈正是雷帕霉素的 mTORC2 副作用。进展最快的新一代方案是 Revolution Medicines 的 RMC-5552——一种选择性 mTORC1 抑制剂,在实体瘤患者的 I 期临床试验中,高血糖发生率仅 4%,而泛 mTOR 抑制剂约 33%。2026 年 2 月,美国卫生部高级研究计划局(ARPA-H)向 Cambrian Bio 拨款最高 3080 万美元,专门开发下一代选择性 mTORC1 抑制剂用于健康衰老——这是美国政府首次在抗衰老药物研发上投入如此量级的资金。
但 Lsp2 的发现提出了一个更激进的策略:不是找更"精准"的 mTORC1 抑制剂,而是去找下游的反馈回路——只掐那条调控支线,不碰 mTORC1 本身。
不过,从果蝇到人类,至少有三道坎要过。第一,Lsp2 是昆虫特有的储存蛋白,哺乳动物中可能不存在直接同源物——你需要找到一个功能等价的分子,而不是同一个基因。第二,人类的 TOP mRNA 调控网络比果蝇复杂得多,这条支线在人体内是否同样独立可操作,还需要验证。第三,Lsp2 敲除的全部获益都建立在"选择性下调核糖体蛋白翻译"上——这是一个全身性的操作,长期安全性数据完全空白。
但这恰恰是这项研究最聪明的地方。它没有试图直接抑制 mTORC1——那是整座工厂的总电闸。它找的是工厂经理桌上的一张特定订单——TOP mRNA 的翻译——然后只在那张订单上盖了"暂缓"。工厂照常运转,扩建项目暂停了而已。
过去延缓衰老的思路一直在找更精准的 mTORC1 刹车。而这项发现说:也许根本不用碰刹车——关掉那个不停喊"加速"的反馈扩音器就够了。