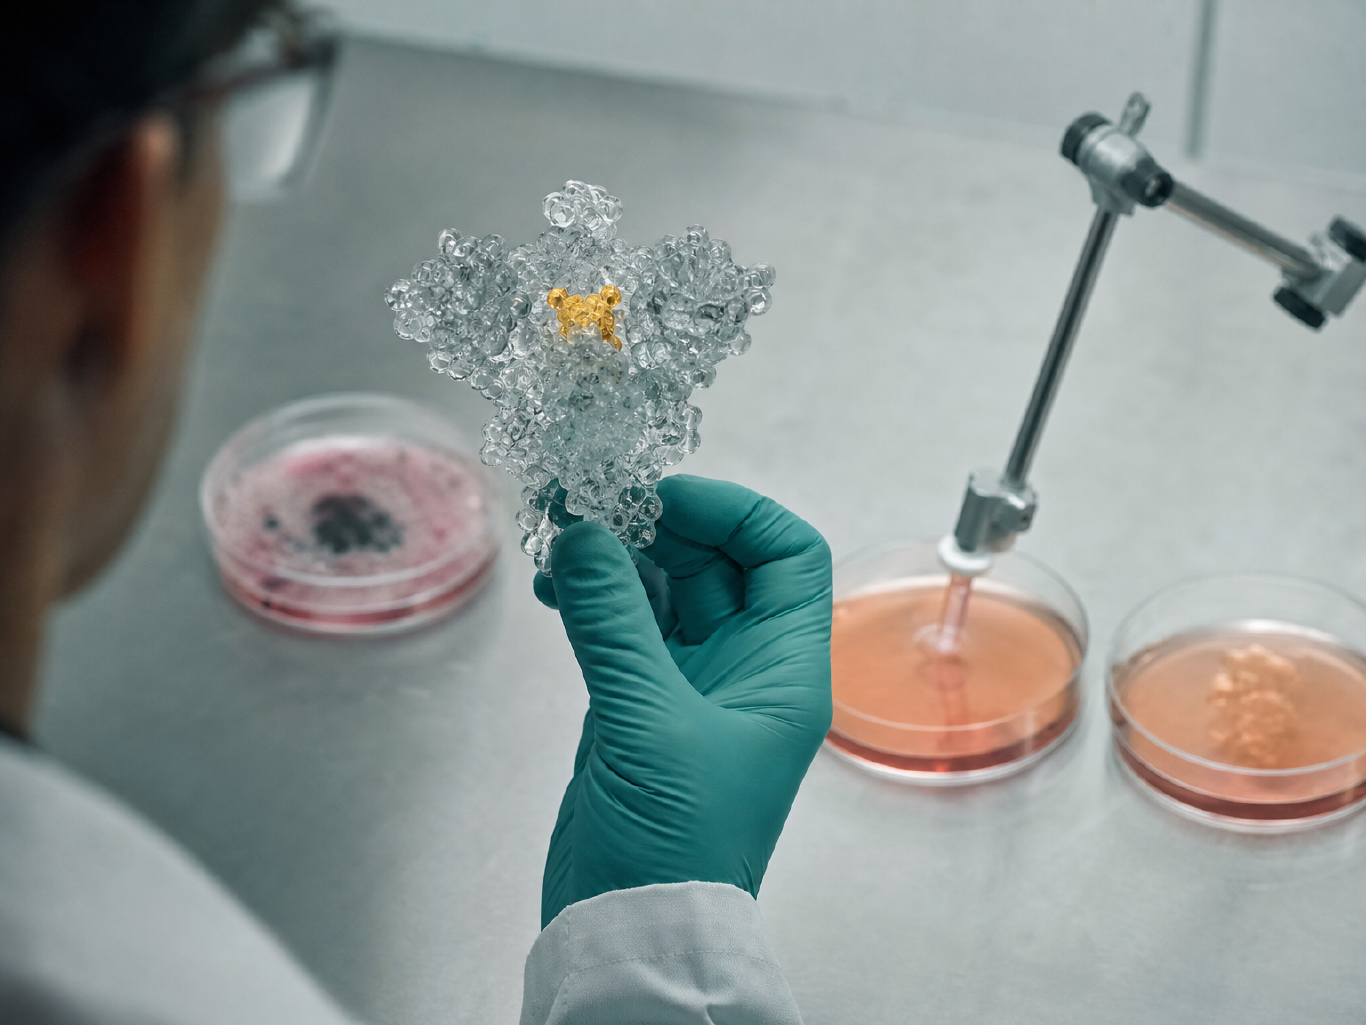
2020年,老挝北部。一支法老联合科考队钻进石灰岩洞穴,在三种菊头蝠的粪便里拎出了几段病毒RNA。测序结果让所有人屏住了呼吸——这些后来被命名为BANAL的病毒,其刺突蛋白上与人体细胞"门锁"接触的17个氨基酸中,有16个和新冠一模一样。它们不需要任何突变,就已经握着一把能打开人类细胞的钥匙。
这把"门锁"的学名叫ACE2受体——细胞膜上的一种蛋白,冠状病毒用它来撬门进入。而在英国,另一群科学家从当地菊头蝠体内分离出的RhGB07病毒,却是另一副面孔:它几乎只认自己宿主蝙蝠的那一把锁,连换个亲戚品种都打不开。
同一个病毒亚属,同样的蝙蝠宿主,同样的ACE2锁芯——为什么有的病毒是万能钥匙,有的却是一对一的专用钥匙?
答案藏在刺突蛋白上一个只有四个氨基酸那么大的缺口里。而这道缺口,正在重写人类对下一场大流行的预警手册。
万能钥匙与专用钥匙:同一个家族,为什么差距这么大?
冠状病毒进入细胞的步骤,本质上是一场"钥匙开锁":病毒表面的刺突蛋白必须精准卡进宿主细胞的ACE2锁孔。插进去了,病毒就能融合进细胞,开始复制。
Thakur团队系统测试了15种蝙蝠冠状病毒的刺突蛋白,用它们去捅16种蝙蝠和18种哺乳动物的ACE2锁孔,一次性画出了整个sarbecovirus亚属——也就是与SARS病毒亲缘最近的冠状病毒分支——的宿主范围地图。
结果呈现出清晰的光谱。在进化树的clade 1分支——SARS-CoV-2及其最亲近的堂表兄弟——通才策略是主流。老挝BANAL三兄弟(BANAL-20-52、-103、-236)几乎和新冠一样百无禁忌,对松鼠猴、果子狸、貉、穿山甲乃至各种蝙蝠的ACE2来者不拒。它们甚至比原始新冠株还广——新冠打不开的小鼠、雪貂和水貂ACE2,BANAL-20-52却畅通无阻。
但在这个家族里混进了一个叛徒:RaTG13。
这个2013年从云南菊头蝠中发现的病毒,刺突蛋白与SARS-CoV-2的氨基酸相似度高达98%——按亲缘关系妥妥是clade 1b的直系成员。可它的宿主范围却像个clade 3的专才,仅能使用寥寥几种蝙蝠ACE2,对人ACE2的结合效率远不如新冠。原因出在一个关键位置:RaTG13刺突蛋白上与ACE2接触的那个齿比新冠矮了一截——氨基酸种类不同,在大多数锁孔里根本卡不住力。
换句话说,光靠基因序列预测溢出风险远远不够,必须实测。
再往后看,clade 3的RhGB07和RfGB02(均从英国蝙蝠中分离)、clade 5的Rc-o319(日本)更是硬核专才:基本只能打开自己宿主蝙蝠的ACE2锁。clade 2的病毒——包括RacCS203、RpYN06——更彻底:它们干脆不用ACE2当受体,这把钥匙完全换了一套锁芯,至今没人知道那套锁芯是什么。
那么问题来了:clade 3的RhGB07虽然整体上是专才,它偏偏能微弱地打开人ACE2——而同clade的RfGB02却不能,尽管两者在钥匙齿部的序列完全一致。动了手脚的是哪个零件?
缺了四个氨基酸,一把钥匙就废了
团队用冷冻电镜——把生物大分子速冻后从多角度拍摄再三维重建的技术——解出了RhGB07刺突蛋白的结构,分辨率达到2.97埃,足以看清氨基酸侧链的朝向。
结果令人意外:RhGB07的刺突蛋白处于"全关闭"构象——三个RBD(受体结合域,即钥匙的齿部)全部趴着,没有一个竖起来亮给ACE2看。相比之下,SARS-CoV-2至少会有一个RBD偶尔抬头迎接受体。光这个姿态差异,就已经让RhGB07的钥匙不太容易插进锁孔。
但真正的命门是一条叫Δ4-loop的环——刺突蛋白上负责和ACE2对位的关键区域之一。在SARS-CoV-2中,这个环包含四个氨基酸:甘氨酸-甘氨酸-天冬酰胺-酪氨酸。而在RhGB07中,这段序列被直接删除了——就像钥匙上缺了四个齿,空缺恰好对应ACE2锁孔上两个关键的识别位点(第38和42位),破坏了原本的分子间引力。之前的研究早已指出,ACE2的第27、31、42位是决定蝙蝠宿主范围的核心关卡。
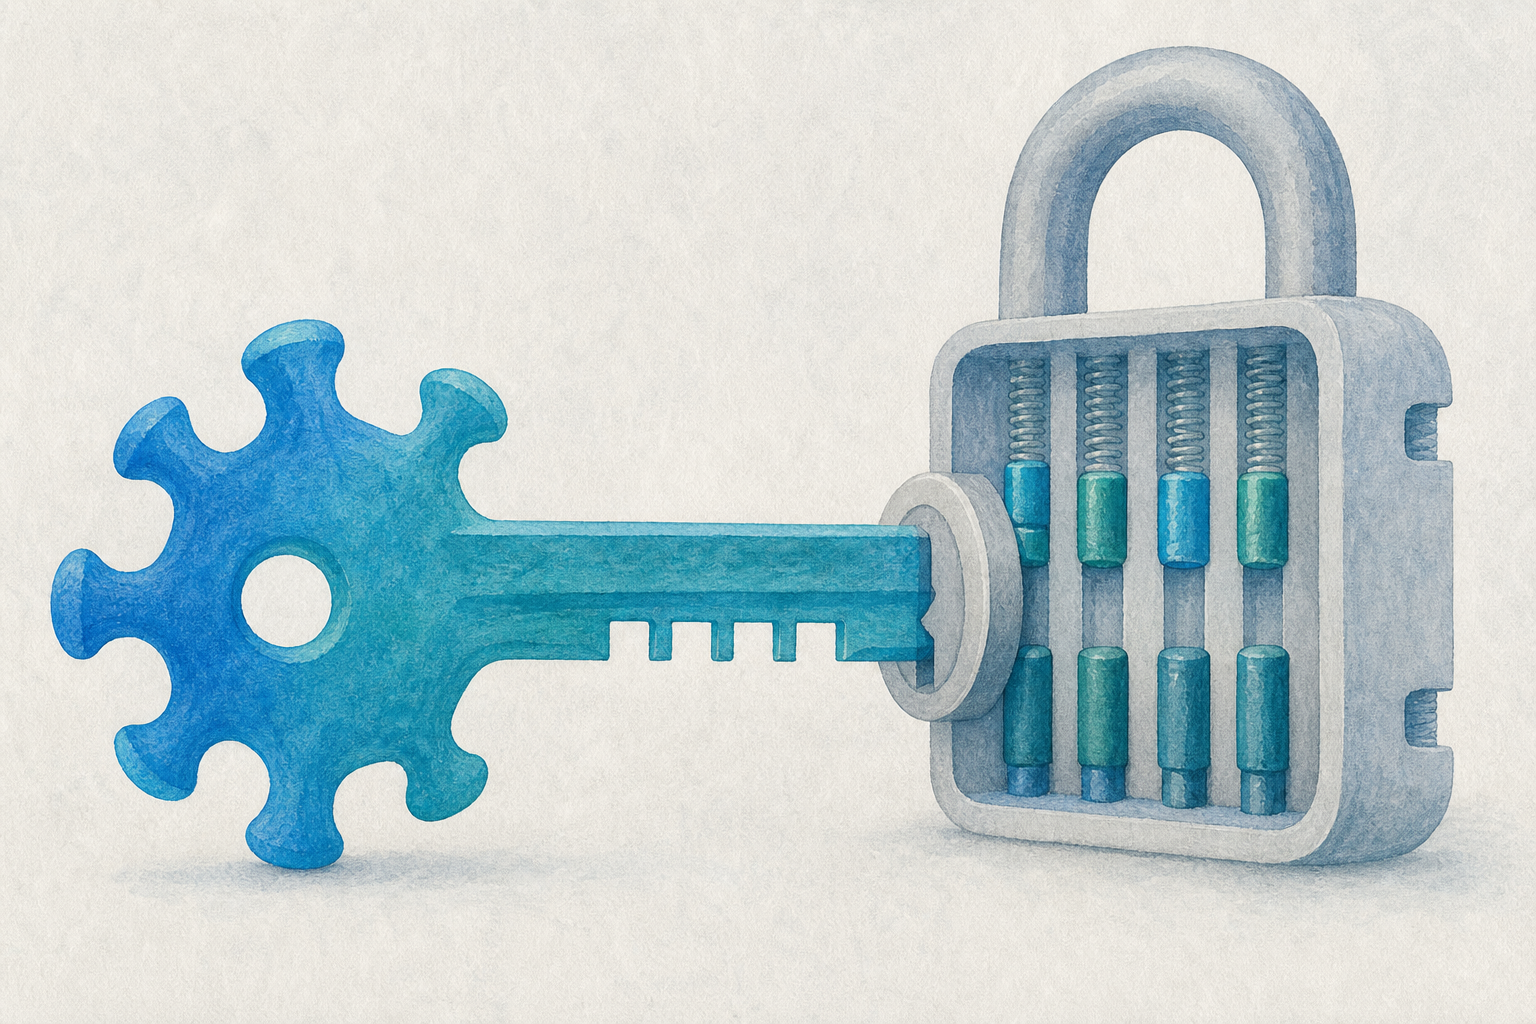
团队做了一组漂亮的反向实验来验证:他们在RhGB07中人工填补了这段缺失——把SARS-CoV-2的那四个氨基酸塞回去。结果呢?病毒对人ACE2的使用能力立刻回升。再进一步,连缺失区上游的一个关键位点也一并改成新冠的样子,钥匙一下子能捅开好几种此前完全打不开的蝙蝠ACE2锁。
但这里有一个微妙的细节:单纯塞入四个氨基酸只恢复了人ACE2使用,却没能拓宽蝙蝠ACE2的范围。要达成后者,还得靠缺失区紧邻上游的一个额外突变(Q437V)——这个位点不在缺失区内,但起到了协同作用。也就是说,通才策略不是某一个环单枪匹马决定的。它需要Δ4-loop的长度、环两侧的电荷分布、乃至RBD上其他接触界面的协同,缺一不可。
Rc-o319(clade 5)则走向了另一个极端——它的钥匙齿部整整缺失了10个氨基酸,整段区域折叠成了一个全新的形状,只适配Rhinolophus cornutus那一把锁。要让它获得对人ACE2的亲和力,至少四个界面区需要同时改造。
这把钥匙的设计,远比我们以为的精巧。
新冠在人体内进化了五年,对蝙蝠的"回家"能力反而退化了
到这里我们知道:有些蝙蝠病毒天生是通才,有些不是。但还有一个动态变量——SARS-CoV-2本身,在数亿人类宿主中的持续进化,正在改变它自己的钥匙形状。
一个反直觉的事实浮出水面:奥密克戎(BA.1)刚出现时,它对蝙蝠ACE2的亲和力反而增强了。刺突蛋白第493位从谷氨酰胺变成了精氨酸——简称Q493R突变——等于在钥匙齿部多加了一道锉痕,让这把本来只适配人锁的钥匙突然也能拧开三种蝙蝠锁。加上N501Y突变早已打开的啮齿类ACE2通道,BA.1那会儿的物种跨度达到了疫情以来的巅峰。
但故事从这里开始反转。
BA.2出现后,Q493R被保留;BA.4/5来了,493位又从精氨酸退回谷氨酰胺(R493Q)——钥匙上那道锉痕被磨平了。XBB和XBB1.5继承了这一回退,同时为了维持免疫逃逸引入了F486V补偿突变。结果:人ACE2照样开,但蝙蝠ACE2的锁打不开了。到XBB一代,多数蝙蝠ACE2的使用率降到接近零。
新冠在人类免疫系统的持续围剿下,被迫在刺突蛋白上反复换牙。每一次逃逸抗体的突变,都恰好把它从"万能钥匙+蝙蝠备用"推向了"高度特化的人钥匙"。它回不了蝙蝠老家了。
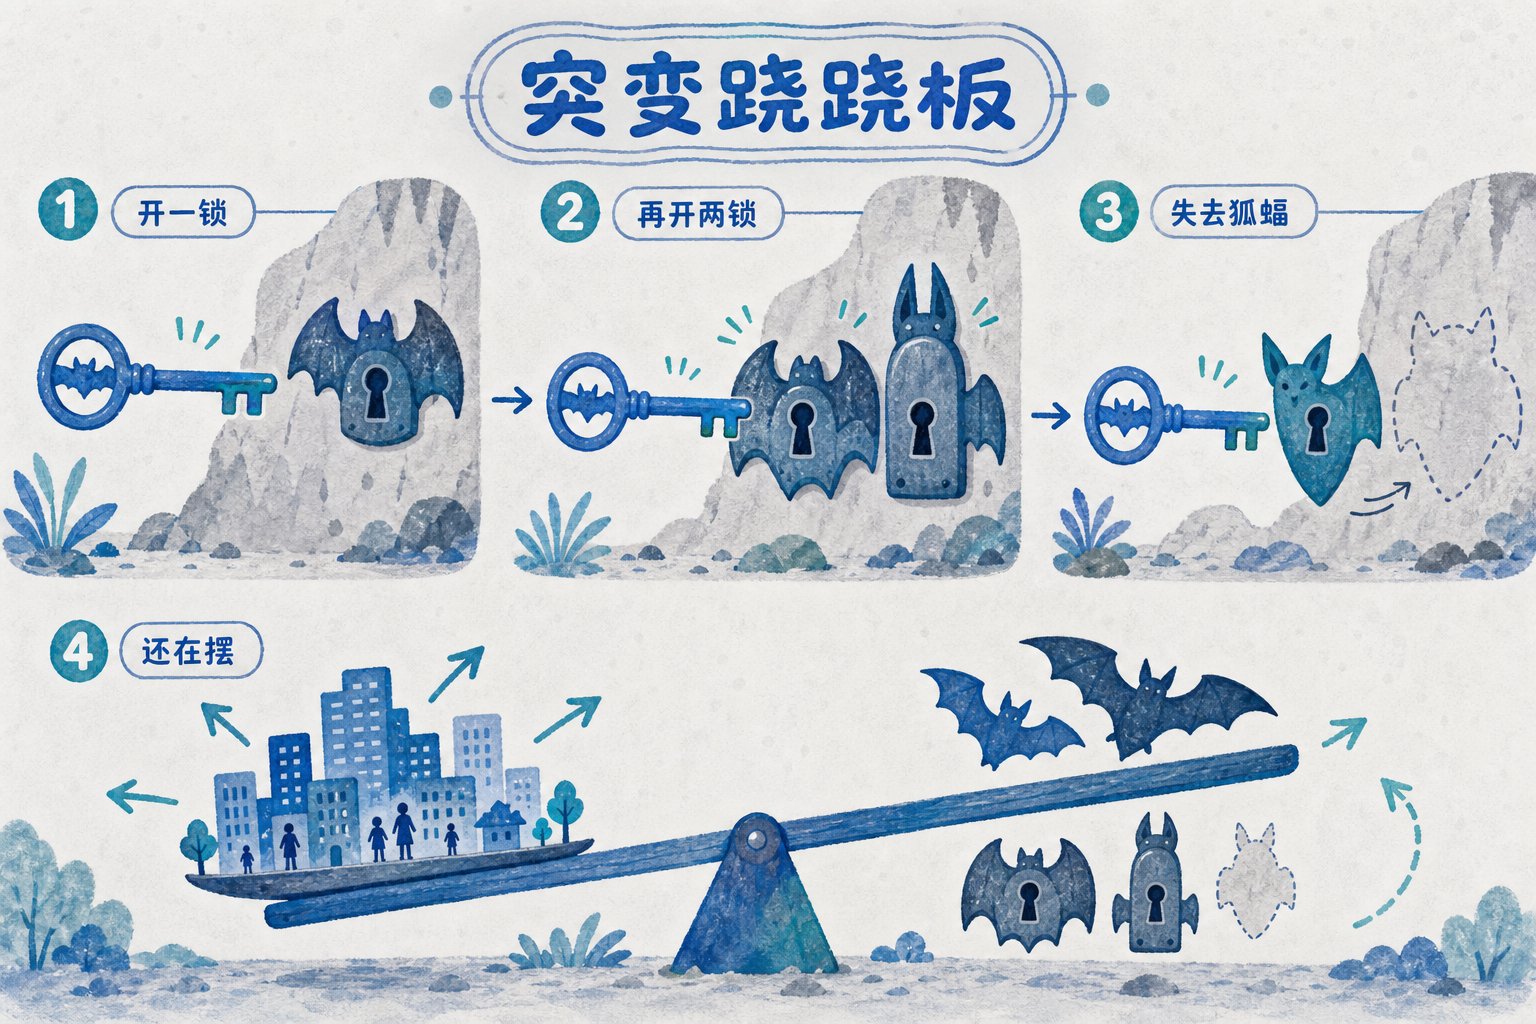
论文用定点突变实验追踪了每个氨基酸替换的独立贡献:Q493R单独就足以切换一种蝙蝠ACE2(Rh. ferrumequinum);N501Y+Q493R组合能同时再开两种;而K417N单独就足以降低对狐蝠ACE2的亲和力。一个进化跷跷板出现了——在人身上变得更能传播的突变,往往恰好削弱了跨物种能力。这对"反向人畜共患病"(人传蝙蝠)算是意外缓冲。但BA.2.86等新变体又出现部分蝙蝠ACE2使用的恢复——跷跷板还在摆。
如果下一个"新冠"从蝙蝠洞跳出来,打过的疫苗能挡吗?
这篇论文的第二条叙事线指向一个更实际的问题:人类现在拥有前所未有的新冠免疫背景——感染过、打过疫苗的人已覆盖全球大多数人口。这套免疫记忆,对蝙蝠携带的sarbecovirus有没有交叉保护?
乐观的答案是:对clade 1病毒(新冠最亲近的亲戚们),有。新冠康复者的血清几乎和中和SARS-CoV-2一样高效地中和了BANAL系列;WIV-1和Rs4231虽中和滴度稍低,仍显著有效。它们属于同一个抗原类型——钥匙柄上的花纹相似,免疫系统认得出来。
更令人意外的发现来自远处的亲戚。即使是clade 3的RhGB07和clade 5的Rc-o319——在进化树上已隔了很远的距离——康复者血清依然检测到了低水平交叉中和。论文将这一残余保护归因于三类单克隆抗体,它们结合在刺突蛋白RBD的不同位置,但有一个共同特征:都不针对钥匙上变化最剧烈的齿部(即直接和锁孔啮合的RBM区域),而是瞄准了钥匙柄上相对保守的区域。
这些保守区域在进化中换不动——一旦突变,刺突蛋白的整体折叠就会崩塌。而且,这些区域连完全不用ACE2的clade 2病毒身上都能找到。
这就给疫苗设计指了一条明路:与其教免疫系统追着变化最快的钥匙齿跑,不如让它优先识别那些换不掉的零件。目前全球已有一个泛sarbecovirus候选疫苗完成I期临床试验,另有多价RBD纳米颗粒疫苗在临床前阶段展示了跨clade 1的保护——单次免疫就让仓鼠完全抵御了两种非新冠clade 1病毒的攻击。
但论文没有回避这道难题的暗面。
2022年,来自俄罗斯索契的Khosta-2病毒——同样是clade 3专才——被证明可以用人ACE2进入培养的人类细胞,却对新冠疫苗接种者血清几乎完全抵抗。也就是说,"能用hACE2但抗原性与新冠截然不同"的血清型,在自然界可能已经存在了,只不过它恰好不是clade 1成员。论文作者也坦承:他们的结论——所有通才ACE2使用者都与新冠抗原性相似——严格来说只适用于已测过的clade 1病毒。clade 2的受体至今没人找到,clade 3还有大量未测序的变异在蝙蝠种群中默默流通,全球蝙蝠冠状病毒采样严重偏斜于中国和东南亚。
所以,这篇论文给出的不是安全证书,而是一套更精确的风险分层工具:通才ACE2使用者大概率可被新冠免疫覆盖;但那些能在通才和专才之间摆荡的夹缝病毒——尤其是clade 3里像Khosta-2那样的存在——才最值得被放在监测雷达的中央。
物种屏障从来不是一道高墙,而是一张可以被几个氨基酸突变烧穿的纸。 人类已经烧穿过一次。下一次,得在这张纸烧穿之前看到火光。