你测了果蝇幼虫视叶里的三千多个胶质细胞,标好所有聚类,自认为拿到了一张漂亮的图谱。然后有人用抗体做了一次核计数——结果,皮层胶质细胞的实际数量大约只有 100 个。另外那 1,200 多个"细胞",根本没有核。
它们是胶质细胞被活活扯断的突起碎片,在组织解离那一步就被打散,裹着自己的 mRNA 一起进了测序仪,通过了所有质控。测序仪从未察觉异常。
这就是一篇《PLoS Biology》论文揭示的、藏在单细胞测序数据里的幽灵——发现它的过程本身就是一次意外。纽约大学 Claude Desplan 实验室原本只想为果蝇视觉系统建一份最完整的胶质细胞发育图谱,却顺手挖出了一个所有做单细胞转录组学的人都该审视的问题。
一个细胞碎成两半,为什么能被当成两个细胞?
把这件事想成一个快递分拣中心被爆破拆除。
总部大楼里坐着管理层,所有的调度电脑都在这里运转,发出指令决定哪些包裹要打包发货。这些调度电脑就是转录因子——能进入细胞核直接开关基因的蛋白质。每天有数百辆卡车从总部出发,每辆车只装特定的几箱货,沿预定路线送往全城。这些卡车就是胶质细胞的突起——从胞体延伸出几十微米,包裹神经元胞体、穿梭在神经纤维网之间。
现在,研究人员需要把整个分拣中心拆成单个组件来分析。他们用消化酶加机械吹打把组织打散——相当于把大楼直接炸碎。总部被炸成了碎片,一部分带着调度室(细胞核),另一部分则只是送货途中被拦腰截断的卡车车厢——没有司机、没有调度电脑,但车厢里的包裹完好无损。
这些无核的卡车碎片进了测序仪后,携带的 mRNA 分子数量足以通过常规质控——每个碎片能测到几百个基因、RNA 分子计数(UMI)达标、线粒体基因占比正常(细胞破裂时该项会异常升高)。经典的聚类算法会把它们和带核的胞体碎片归到一起,因为两者的 mRNA 种类高度相似。但如果你看得足够仔细——就像 Ferreira 团队做的那样——你能发现关键差异。
有核碎片里的转录因子 mRNA 占比显著更高。这很合理:转录因子是用来进核调控基因表达的,它们的 mRNA 没理由被装进送货卡车。反过来,突起碎片里富集的是一批已知会被主动运输到细胞远端的 mRNA:负责细胞骨架动态的 β-肌动蛋白、在哺乳动物神经突中富集的免疫亲和素 FK506-bp2、以及与星形胶质细胞突触功能相关的脂肪酸结合蛋白 Fabp。
还有一个更直接的判据:内含子。基因在细胞核里刚被转录出来时,包含大量会被剪掉的片段——这些就是内含子,剪掉后才成为成熟的 mRNA 被送出核。因此,只有带核的碎片里才会有大量内含子序列,测序中约 3% 的读数能比对到内含子区域;无核突起碎片里这个数字只有 1.3%。团队用能在完整组织中直接看到 mRNA 位置的染色技术做了验证——转录因子 mRNA 信号严格围绕核周,而全细胞分布的对照基因则一路延伸到突触末梢。
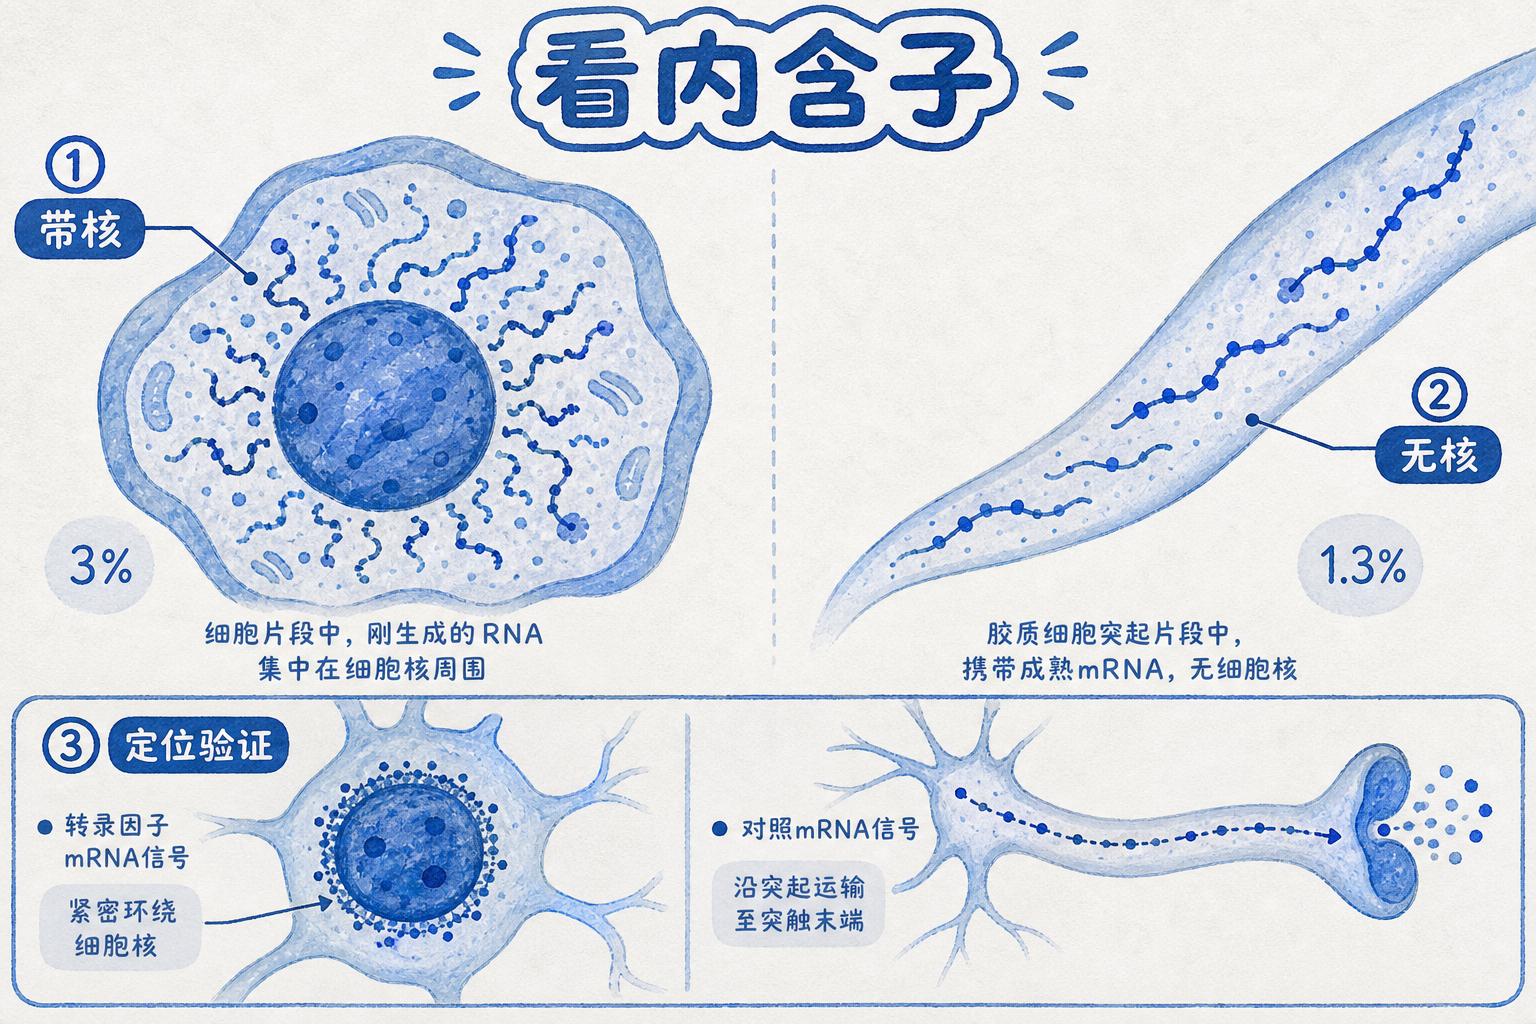
基于这三个信号——低 UMI、低转录因子、低内含子——他们设计了两套计算方法筛查"幽灵细胞"。仅皮层胶质细胞的突起碎片就占了幼虫胶质细胞总数的四成,剔除这些幽灵后,才构建出一张干净的胶质细胞图谱。
无核的碎片里,装的不是垃圾,是精心分拣的分子快递
这些突起碎片之所以值得认真对待,是因为它们不仅仅是技术噪声——它们本身就携带着重要的生物学信息。
果蝇的 Act5C 基因编码 β-肌动蛋白——细胞骨架的核心砖块。它的 mRNA 是科学史上第一个被证明会主动运到细胞特定位置的转录本,早在 1983 年就在海鞘胚胎中被发现不对称聚集。后来在哺乳动物神经元中,它被包装成运输颗粒,沿细胞内部的分子轨道(微管),由分子马达拖到神经突最远端的"探路器"(生长锥),在那里被即时翻译成蛋白质,为探路器转向提供原材料。
Fabp 的哺乳动物同源基因 Fabp7 的故事更耐人寻味。它的 mRNA 末端带有一段特殊调控序列,能被一种叫 CPEB1 的蛋白质识别。CPEB1 像一个"海关放行章"——决定哪些 mRNA 可以装上运输马达、运往细胞远端,以及到站之后什么时候启动翻译。在小鼠星形胶质细胞中,Fabp7 mRNA 被 CPEB1 护送到突触周围,它的丰度还会随昼夜节律波动——白天更多运往突起,夜间更多留在胞体。
换句话说,突起碎片里的 mRNA 不是随机漏出去的。它们是被挑选、装车、发往特定地址的货物。Ferreira 团队的意外发现把解离造成的数据伪影变成了研究 mRNA 亚细胞定位的技术窗口。以往区分胞体和突起的转录组,通常需要物理分离细胞区室,操作繁琐且通量极低。而他们的方法,本质上是用"爆破残骸清单"反向推断"发车时的装货单"。
蛹期第 30 小时,一种胶质细胞突然分裂成两种命运
如果只停留在幽灵细胞的层面,这篇论文不过是一则高级的技术警告。但它真正的生物学贡献在于:在清洗掉所有突起伪影之后,团队终于有了一张能用的发育胶质细胞图谱,并据此追踪了一种胶质细胞从幼虫到成虫的命运分岔。
这种细胞叫髓质神经纤维网胶质细胞。在幼虫阶段,它们在转录组上完全均一——所有细胞表达同一套基因,包括决定身份的核心转录因子 gcm 和 Hand,以及被 Notch 信号通路(发育中反复被用来决定"细胞该走哪条路")激活的一整套下游基因。其中一个叫 Hey 的蛋白质在它们刚诞生时短暂出现,一俟细胞迁移到位就迅速消失——像一个只在入职第一天亮一下的工牌。
然后,在蛹期第 30 小时左右,这个均一的群体开始分裂。整合幼虫、四个蛹期和成虫的 3,168 个单细胞后,"伪时间轨迹"——一种按转录组相似度把细胞排成发育路线的计算方法——清晰显示出一条先直行再分岔的路径:从幼虫到 P30 是一条线,之后分叉为两股,分别走向两个截然不同的成体命运——星形胶质细胞样胶质细胞和包裹胶质细胞。前者在神经纤维网中伸出密集、高度分支的细突,像一张精致的渔网覆盖在突触周围;后者则发出少而长、分支有限的大突起,主要包裹在光感受器轴突周围。
是什么决定了分岔方向?团队在分岔点锁定了四个候选转录因子,其中任何一个都可能是按下开关的那个分子。但开关本身怎么被触发?目前有三套假说。第一套:命运出生即定——谱系追踪直接推翻了它:表达 Hand 的幼虫髓质胶质细胞(仅 26%)既能产生星形胶质细胞也能产生包裹胶质细胞。第二套:最终位置的外部信号决定命运——在视叶另一区域这成立,那里两种胶质细胞分居神经纤维网远端和近端,泾渭分明;但在髓质,两种细胞肩并肩环列,毫无空间线索。这就指向第三套——随机决定。一个髓质胶质细胞在 P30 前后掷了一次骰子,掷到什么就走哪条路。
这其实是发育生物学中反复出现的逻辑:当空间信号不足以提供指引时,随机性本身就是一种可靠的策略——只要两种命运的数量比例最终被维持在合理范围内。至于这个比例怎么维持的,答案还锁在那四个候选转录因子的功能实验里。
你的单细胞数据里,可能也藏着几千只幽灵
回到幽灵细胞的问题——这件事绝不只属于果蝇。
2022 年,《Neuron》上的一篇论文报道了哺乳动物脑组织单细胞核测序中的同类现象:神经元胞体和突起的碎裂产物释放出大量游离 mRNA,这些"环境 RNA"在微流控通道中被其他细胞的液滴捕获,导致胶质细胞核的转录组被神经元信号污染。作者发现,一个曾被标注为"未成熟少突胶质细胞"的细胞群,实际上根本不存在——它只是神经元环境 RNA 在胶质细胞核数据上投射出的幻影。用超高灵敏度的单分子 RNA 成像技术在完整组织中验证,完全没有找到对应的细胞。
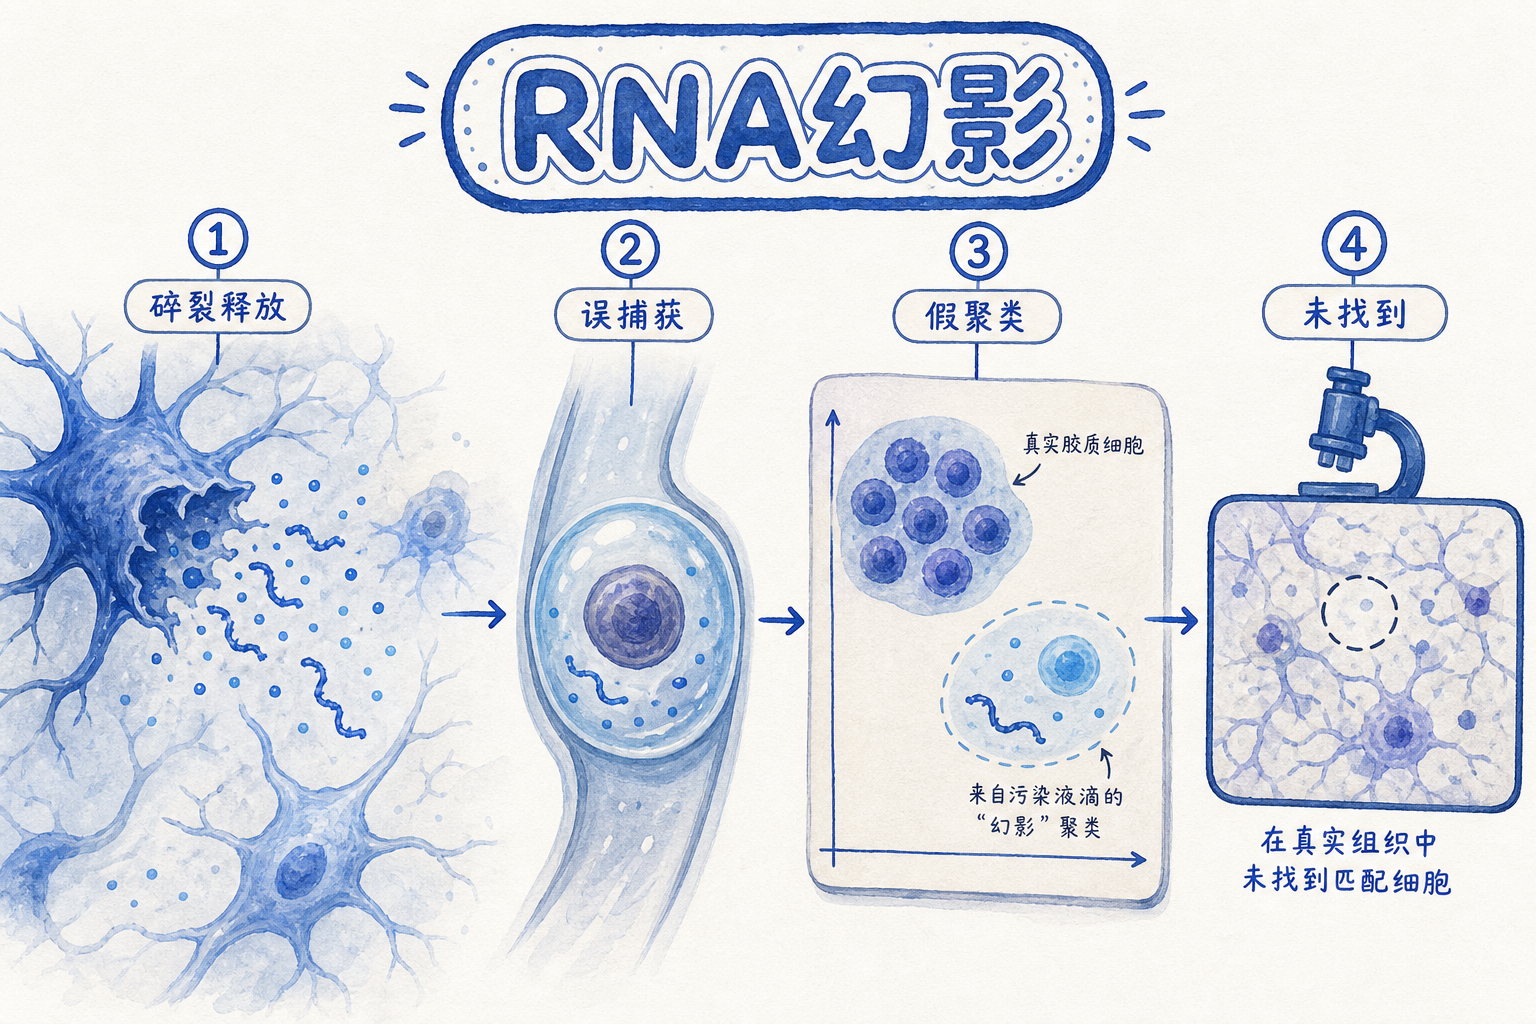
这和 Ferreira 团队的发现是同一种逻辑,只是表现形式不同:在果蝇那边,无核突起碎片自己形成了独立聚类;在哺乳动物这边,碎片释放的 mRNA 被其他细胞液滴吸收,制造了虚假的基因表达信号。两种都是"幽灵",都来自同一个源头——大型极化细胞在解离过程中被机械力撕裂。
这种伪影的影响被严重低估。目前单细胞转录组学的主流质控——过滤 RNA 分子数太少的液滴、线粒体基因占比异常的液滴——对此完全无效:突起碎片的分子数足够高、线粒体比例正常,轻松穿过滤网。Ferreira 团队的三重判据是目前一种有效的计算筛查方案,但有一个显眼盲区:如果某个细胞类型的突起碎片碰巧是数据集里该类型的唯一代表——比如论文中视网膜包裹胶质细胞,胞体在解剖时已被切除,只有突起留在样品中——这套方法就无法区分"幽灵"和真实细胞。
更值得追问的是:在人类细胞图谱这样的大规模项目中,究竟有多少被标注为"新细胞类型"的聚类,其真身不过是某种大细胞的突起碎片?心肌细胞——成年人心室肌细胞长度超过 100 微米,而主流商用单细胞平台的进样通道内径只有约 30 微米,不到一根头发丝直径的一半——在心脏单细胞研究中早已被默认改用核测序,就是这个原因。但肝细胞、神经元、星形胶质细胞——这些同样体型庞大的细胞类型,会不会也有突起碎片藏在现有图谱的某个角落里?
Ferreira 团队把这个问题从模糊的担忧变成了可操作的计算任务,所有代码和流程已开源。对任何处理大型极化细胞 scRNA-seq 数据的实验室,这套方法值得成为质控标配。
做单细胞测序的人有个心照不宣的信念:一个液滴,一个细胞。这篇来自果蝇视叶的研究告诉我们,一个液滴也可能只是一个细胞的断臂,带着满车分子快递,在数据里冒充一个完整的生命。