2012年,科学家从三位打过流感疫苗的志愿者血样里捞出了一株抗体,取名CR9114。论文发表在《科学》上,结尾的判断自信到几乎像预言:「像CR9114这样的抗体,大概率在很多人的免疫系统里都存在,随时能被激发出来。」
十四年过去了。翻遍全球实验室从数千名供体中分离的超过5000株流感抗体,CR9114仍然是唯一一株能同时抓住甲型流感(包括组1和组2)和乙型流感病毒的广谱中和抗体。它的基因模板IGHV1-69——你可以把它理解成人类抗体基因库里最常用的一个"标准零件编号"——几乎人人都有。它的体细胞超突变不过16个:所谓体细胞超突变,就是免疫B细胞故意在自己的抗体基因里随机引入变化,赌其中某个版本能抓病毒抓得更紧。放在广谱抗体里,16个突变简直算轻装简行——HIV的广谱抗体动辄要攒40到110个突变才能上岗。
那么问题来了:既然基因零件这么普通、突变量这么少,为什么免疫系统就是造不出第二个CR9114?
这把万能钥匙,锁了十四年
要理解CR9114的孤独,得先知道流感病毒的防御工事有多棘手。
流感病毒表面的血凝素蛋白——学名hemagglutinin,简称HA——长得像一根棒棒糖:顶上是善变到离谱的"头部",底下是一段相对保守的"茎部"。每年季节性流感疫苗诱导的抗体,绝大多数冲着头部去;头部一变异,疫苗就脱靶。但茎部因为承担着病毒进入细胞的关键机械动作——在酸性环境下触发膜融合——变异的自由度极低,成了广谱抗体理想的靶标。
问题在于,茎部虽然保守,但甲型流感(分19个亚型,归为组1和组2)和乙型流感(分两个谱系)的茎部在原子细节上差异不小。绝大多数茎部抗体只能中和组1的甲流病毒,连组2的甲流都跨不过去,更不用说乙流。CR9114是个例外:它不仅跨了组1和组2,连乙流的HA也照抓不误。
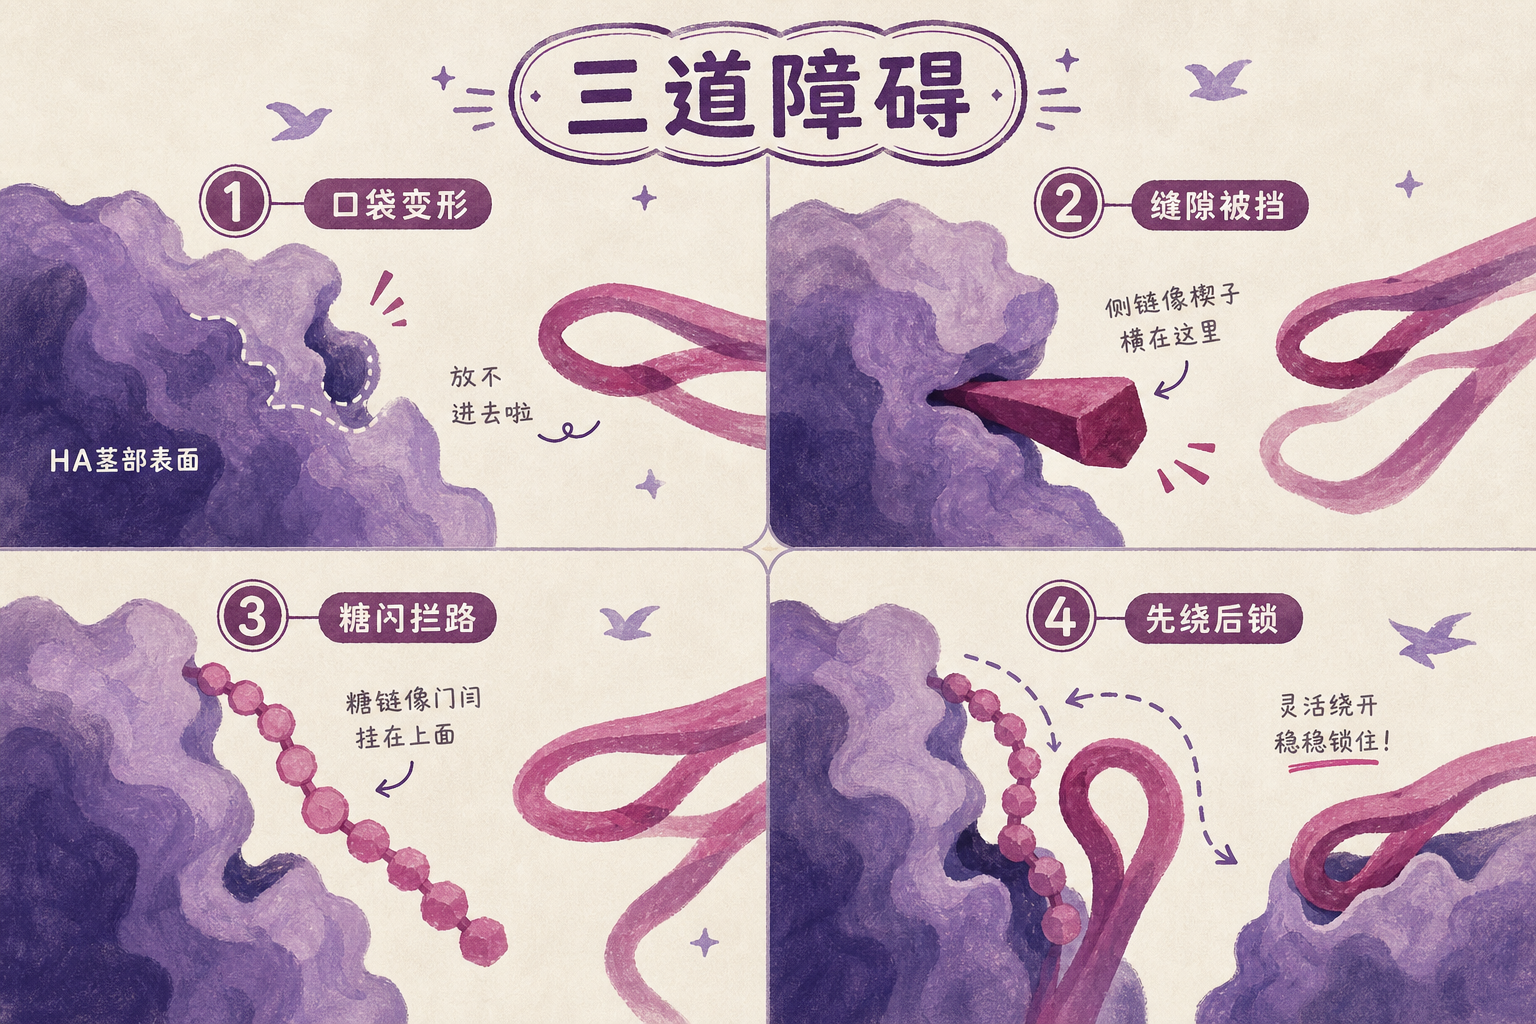
它是怎么做到的?2012年的结构解析揭示了三个必须同时克服的障碍:组2 HA茎部有一个关键氨基酸从苏氨酸变成了天冬酰胺,改变了局部的疏水口袋形状;另一处多态性则扭歪了色氨酸侧链的朝向,挡住了抗体本该插入的缝隙;而乙流HA上还蹲着一颗糖基化修饰,像门闩一样横在结合界面上。CR9114靠的是它重链上那几个真正接触病毒的柔性环——学名CDR(互补决定区),相当于钥匙的"齿"——在结合前后的构象可塑性:先把自己扭成一个能绕过门闩的形状,再锁进去。
这本该是一套极其苛刻的几何约束。可当年的研究者看着它的基因序列——常见基因模板、16个体细胞超突变、没有任何插入缺失或结构域交换之类的罕见特征——觉得很乐观:这不难,人体应该能量产。
一场突变普查揭开了什么:对H1越好,对H3和乙流就越糟
伊利诺伊大学厄巴纳-香槟分校的课题组没有停留在推测上。他们做了一个信息量巨大的实验:把CR9114抗体重链可变区的每一个氨基酸逐一突变成其他19种可能的氨基酸——总共产生数千个单点突变版本——然后用一种能同时给所有突变版本逐个测量结合力的高通量技术,分别测出每个版本对三种流感HA(H1茎部、H3、乙流)的抓握强度。
本质上是一场"突变普查"。它不是在找哪些突变"好",而是在画一张完整的亲和力地图:每个位置、每种替换,对三个靶标分别是什么效应。
结果出来的时候,一张令人不安的图景浮现了。如果把抗体的突变容忍度——即随机突变平均对结合力的伤害程度——画成一条光谱,它会沿H1→H3→乙流的方向急剧下降。对H1来说,大多数突变只是轻微拖后腿;对H3,伤害明显加重;到了乙流,几乎所有突变都是灾难性的。中位数损伤从H1的−0.22跳到H3的−0.40,再到乙流的−0.82(数值越负,突变对结合力的杀伤力越大)——每跨一个靶标,容忍度就塌掉一层。到了乙流这里,抗体几乎到了"碰哪都坏"的地步。
这意味着什么?想象你在雕刻一把钥匙,它需要同时打开三把锁。你手里有一块初始的钥匙胚——那是CR9114的原始版本(胚系抗体),它只能勉强打开H1这把锁,结合力约185 nM,相当于抗体和病毒蛋白的牵手相当松,但还够用。在免疫系统的"训练营"——生发中心——里,这把钥匙被反复打磨:随机突变、筛选、再突变、再筛选。每一次打磨只要让它对H1开得更顺,就算及格。生发中心的选择压力其实很弱——它不要求你同时开三把锁,眼前的锁能打开就够了。
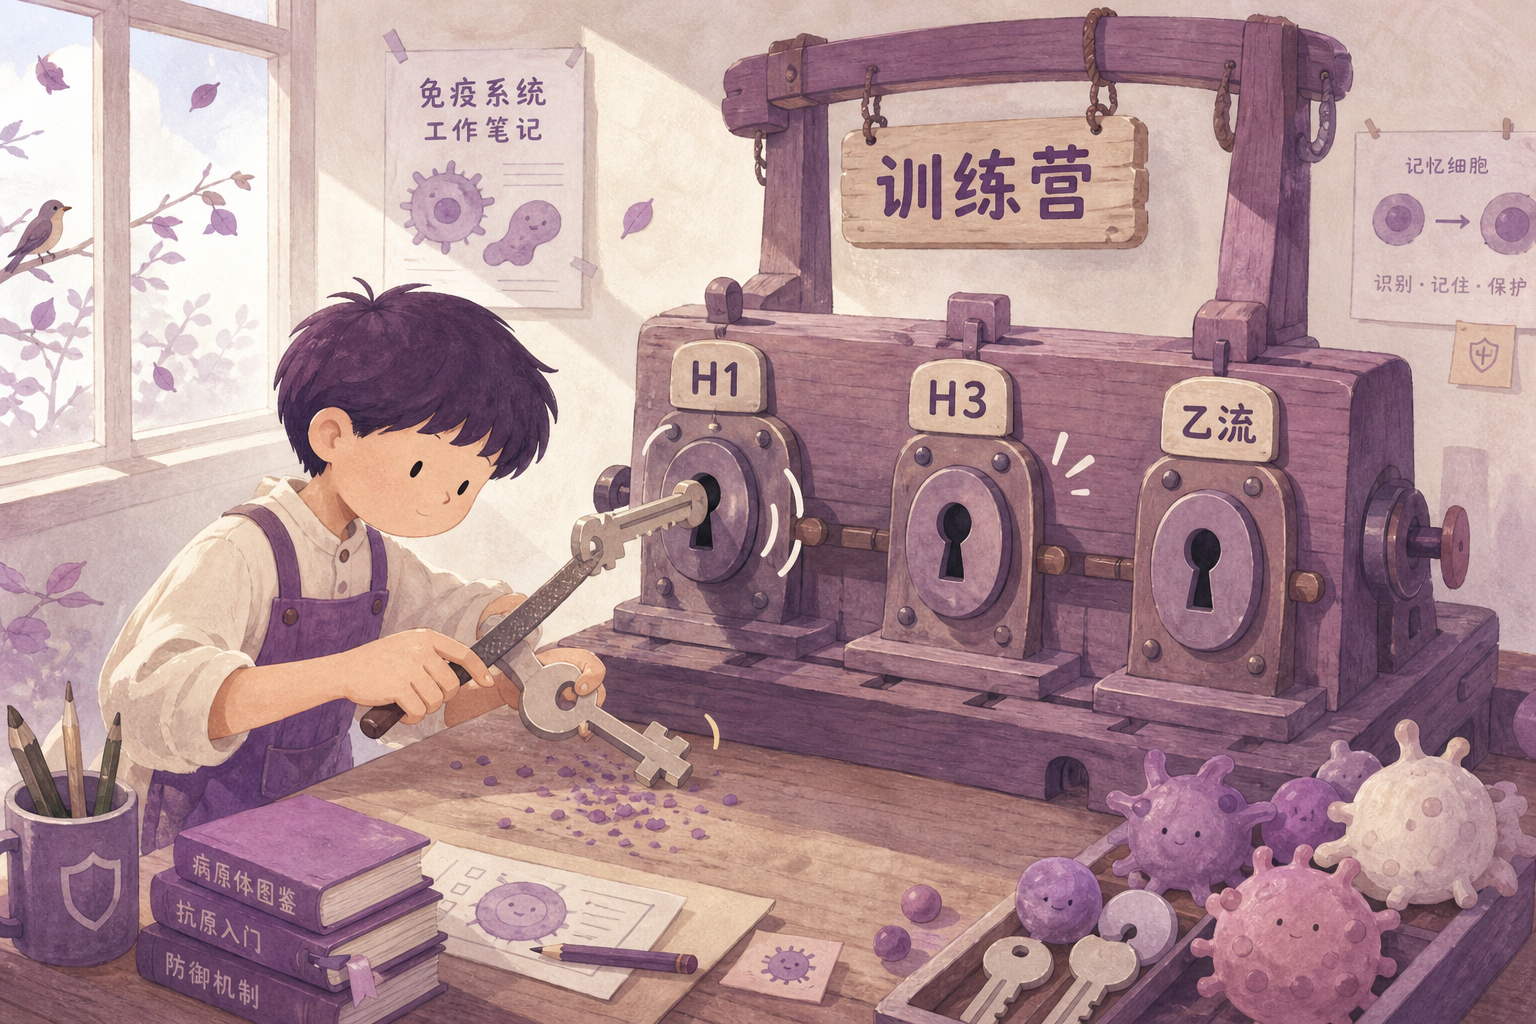
问题就出在这里。你为适配锁H1刻下去的每一刀,都在同时改变钥匙的轮廓。而这些改动中,有大量是锁H3和锁B完全不能容忍的。论文的数据显示:在胚系CR9114中对H1几乎无害的突变,放到成熟抗体身上去测对H3和乙流的结合——常常是直接清零。
同一个突变,两副完全相反的面孔
更让人头皮发麻的,还不是突变在三个靶标上同时"一好两坏",而是同一个突变,在不同版本的抗体里效果截然相反。这在演化生物学里有个专门的名字——上位效应:一个突变的后果,取决于它落在什么样的遗传背景上。
论文里最戏剧性的案例是重链第73位氨基酸。CR9114的原始版本在这个位置是一个赖氨酸,成熟版本则突变成了异亮氨酸。研究人员试着把这个位置改成色氨酸——一个体积大得多的氨基酸。在原始版本里,这一改动改善了对H1的结合;但在成熟版本里,同样的突变彻底摧毁了对H3和乙流的结合。原因?成熟抗体的第74位已经先一步从丝氨酸突变成了苯丙氨酸,苯丙氨酸的大侧链刚好与色氨酸撞个满怀——这是空间位阻,是物理碰撞。而原始版本的第74位还是小小的丝氨酸,完全没有这个问题。研究人员甚至同时做了两个突变试图补救,结合力仍然回不来。有些坑,一步踩进去就填不上了。
再看第52位。CR9114的原始版本在这里是异亮氨酸,排斥水、不形成氢键;成熟版本突变成了丝氨酸,丝氨酸恰好能伸出一个化学臂,与CDR H3环上一个关键酪氨酸之间牵起一座分子内氢键桥——这座桥同时锁住了两个抗原结合环的构象,等于把钥匙齿的精密轮廓固定了下来。把丝氨酸突变成甘氨酸或缬氨酸,桥就断了。桥一断,钥匙的齿就塌了一块——对H3和乙流的结合直接消失,只留下对H1的微弱残余。可在原始版本里,异亮氨酸本来就没有这座桥,同样的突变根本无损。同一个突变,在进化前无害,在进化后致命——这就是上位效应在三维结构里的物理真相。
这并非CR9114独有的遭遇。论文进一步检查了文献中已报道的160株IGHV1-69茎部抗体,发现绝大多数都携带至少一个在胚系CR9114背景下严重有害的体细胞超突变。上位效应是这个抗体家族进化的普遍游戏规则。这跟蛋白质演化领域的一个经典发现遥相呼应:研究者曾重建了一类帮助其他蛋白质正确折叠的"保姆蛋白"跨越十亿年的演化史,发现77%的历史氨基酸替换要么依赖某个先行的"许可突变"才能成立,要么一旦被后续突变"焊死"后就再也无法回复——蛋白质的演化在数学意义上就是不可逆的。
这里有一个残酷的认知翻转:我们通常以为抗体亲和力成熟是一个"越变越好"的上升螺旋,但CR9114的故事告诉我们,每一次对H1的适应,都在悄然关闭通往广谱之路的其他分岔。这不是"走得还不够远"的问题,而是"走得越远,路越窄"的陷阱。
造不出万能钥匙,不如打两针?
这个发现对于通用流感疫苗的研发意味着一个根本性的策略拷问。
过去十几年,多个基于HA茎部的疫苗候选分子进入了临床试验。嵌合HA疫苗安全且诱导了持久的茎部抗体,但反应范围仅限于组1甲流。H1茎部纳米颗粒疫苗同样只诱导了组1内的交叉中和,组2和乙流完全没有应答。反过来,用组2茎部抗原做的疫苗也只能激发组2特异性的抗体,组1纹丝不动。一个规律在所有临床试验中反复出现:茎部疫苗能稳健地激发"组内"广谱抗体,但跨组屏障从未被突破。论文作者直言,缺乏可靠的方法激发跨组HA茎部广谱中和抗体,是泛甲型流感疫苗面临的最大障碍。
但论文同时指出了一条务实的出路。既然CR9114这种横跨甲、乙两型的超级广谱抗体几乎不可能被可靠诱导——它的进化路径被上位效应和多效性堵得只剩一条窄到极点的独木桥——那不如把问题拆开。激发泛甲型流感(组1加组2)的抗体,其实难度要低得多。2024年一项研究证明,对于IGHV1-18这个抗体基因模板,仅仅一个氨基酸的改变就能赋予它跨组中和活性。换句话说,一把能同时开组1和组2两把锁的钥匙,不是痴人说梦。
作者的建议因此很清楚:用一套免疫原专攻泛甲型流感抗体,再用另一套免疫原专攻泛乙型流感抗体——两针组合,覆盖全部季节性流感威胁。这不是"次优方案",而是在理解了分子进化的物理边界之后,最理性的设计选择。
十四年前,科学家以为CR9114是一个可以复制的模板。十四年后,我们终于看清了它的真面目:它不是一个模板,而是一个概率极低的巧合——是一条进化在无数分岔口上恰好没有走错的路径。蛋白演化的不可逆性,让这条路径几乎不可能被另一套突变组合重新走通。
钥匙可以被复制,但只有在你知道它被雕刻出来的确切顺序时——而免疫系统没有地图,只有试错。